



Nanopartikel-Toxizität in der Biomedizin: Auswirkungen reaktiver Sauerstoffspezies
Zusammenfassung
Die einzigartigen physikochemischen Eigenschaften von Nanopartikeln haben in letzter Zeit zunehmende Aufmerksamkeit in vielfältigen Anwendungen, insbesondere im biomedizinischen Bereich, erregt. Allerdings bleiben Bedenken hinsichtlich potenzieller toxikologischer Effekte bestehen, da Nanopartikel eine höhere Tendenz aufweisen, übermäßige Mengen reaktiver Sauerstoffspezies (ROS) zu generieren. Aufgrund ihres starken Oxidationspotenzials kann der durch Nanopartikel induzierte ROS-Überschuss Biomoleküle und Organellstrukturen schädigen und zu Protein-Oxidationscarbonylierung, Lipidperoxidation, DNA/RNA-Brüchen und Membranstrukturzerstörung führen, was weiter Nekrose, Apoptose oder sogar Mutagenese verursacht. Dieser Review fasst die Mechanismen und Verantwortlichkeiten der ROS-Generierung durch Nanopartikel auf zellulärer Ebene zusammen und liefert Einblicke in die Mechanik der ROS-vermittelten Bio-Toxizität. Wir fassen die Literatur zur Nanopartikel-Toxizität zusammen und schlagen Strategien zur Optimierung von Nanopartikeln für biomedizinische Anwendungen vor.
Einleitung
Nanopartikel (NPs) sind eine Klasse neuartiger synthetischer Partikel mit Abmessungen < 100 nm. Je nach Form und Größe verleihen die distincten physikalischen und chemischen Eigenschaften NPs unterschiedliche Funktionen. NPs werden in vielen Konsumprodukten eingesetzt, darunter Textilien, Kosmetika, Wasseraufbereitung und Lebensmittelverpackungen [1, 2]. Sie finden auch Anwendung in der Photokatalyse, Energietechnik und Optoelektronik [3–6].
Insbesondere sind NPs zu einem bevorzugten Material in biomedizinischen Anwendungen geworden und werden breit in Biosensoren, siRNA-Delivery, gezieltem Gen-Knockdown, Drug Delivery und biokompatiblen Füllmaterialien eingesetzt [7–11]. Weitere Anwendungen werden kontinuierlich entdeckt. So zeigte Duan et al. [12], dass Fe₃O₄-Polyethylenglycol-Polyamidamin-Matrix-Metalloproteinase2@Chlorin e6 (Fe₃O₄-PEG-G5-MMP2@Ce6) Nanoproben das Magen-tumorwachstum signifikant hemmten. In einem anderen Fall konnten pDNA-Polyethylenimin-CeO-Nanopartikel (pDNA-PEI-CeO NPs) mehr Fibrosarkom-Zell-Apoptose induzieren [13]. Weiterhin konnten hohle Siliziumdioxid-Fe-Polyethylenglycol-menschliche epidermale Wachstumsfaktor-Rezeptor-2-Nanopartikel (HS-Fe-PEG-HER2 NPs) selektiv Tumorzellen binden und als Bildgebungsmittel zur Unterscheidung von normalem und krebsartigem Gewebe dienen [14]. Schließlich dienen Silbernanopartikel (Ag NPs) als Nano-Antibiotika, die resistente bakterielle Biofilm-assoziierte Infektionen effizient bekämpfen [15].
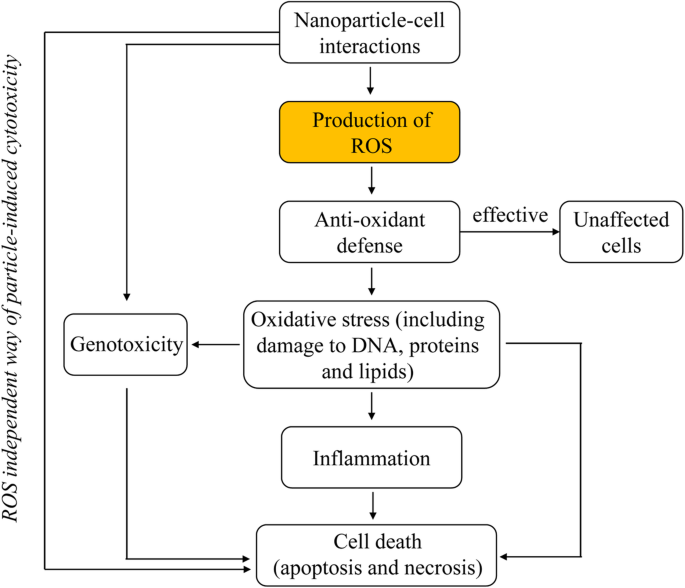
Trotz des Potenzials positiver Anwendungen in verschiedenen Bereichen haben eine zunehmende Anzahl von Studien ihre nachteiligen Effekte auf Organismen [16, 17] und Zellen nach NP-Exposition [18, 19] aufgezeigt. Das toxische Potenzial von NPs hängt von ihrer Größe und Form ab, die ihre Neigung bestimmen, die Generierung reaktiver Sauerstoffspezies (ROS) zu induzieren [20, 21]. Die überschüssige ROS-Generierung kann eine Reihe pathophysiologischer Folgen auslösen, einschließlich Genotoxizität, Apoptose, Nekrose, Entzündung, Fibrose, Metaplasie, Hypertrophie und Kanzerogenese [18, 22, 23]. Die Toxizität von NPs wurde auch mit erhöhter Expression pro-inflammatorischer Zytokine und Aktivierung inflammatorischer Zellen wie Makrophagen in Verbindung gebracht, was die ROS-Generierung weiter steigert [23, 24]. Die erhöhte ROS-Generierung nach NP-Exposition induziert zudem die Modulation zellulärer Funktionen mit teils fatalen Ergebnissen [17, 23, 25]. In diesem Review diskutieren wir die Hauptmechanismen der durch NPs induzierten ROS-Ausbrüche, analysieren die primären Gründe für die Zytotoxizität von NPs und fassen die potenziellen pathogenen Effekte zusammen. Unser Review liefert überwältigende Evidenz, dass die Überproduktion von ROS die Hauptursache für die Bio-Toxizität von NPs ist. Daher sollte zukünftige Forschung darauf abzielen, die Zytotoxizität von NPs durch Design von NPs mit geringer ROS-Induktion zu reduzieren.
Anwendung von NPs im biomedizinischen Bereich
NPs wurden in einer Vielzahl medizinischer Anwendungen eingesetzt, und mehrere neuartige NPs weisen Eigenschaften auf, die für neuartige biomedizinische Materialien vielversprechend sind. Wie in Tabelle 1 zusammengefasst, kann Nano-C60 als Antikrebsmittel eingesetzt werden, das Krebszellproliferation sowohl in vivo als auch in vitro hemmt [26]. ZnO NPs wurden als Füllmaterial in orthopädischen und dentalen Implantaten verwendet [38]. TiO₂ dient als antibakterielles Mittel, in Luft- und Wasserreinigung und für Dentalprothesen [52–54]. Davaeifar et al. berichteten, dass ein Phycocyanin-ZnO-Nanorod Zellen durch Verringerung endogener ROS-Generierung schützen kann [68]. Pacurari et al. wiesen darauf hin, dass SWCNTs als klinische Diagnostika und Bioengineering-Materialien anwendbar sind [88]. Darüber hinaus können zahlreiche NPs als antimikrobielle Mittel dienen, die Bakterien durch Induktion von ROS-Ausbrüchen abtöten (Tabelle 1).
Mechanismen der durch NPs in Zellen induzierten ROS-Erhöhung
ROS sind chemisch reaktive Teilchen, die Sauerstoff enthalten, darunter Wasserstoffperoxid (H₂O₂), reaktive Superoxid-Anionenradikale (O₂⁻) und Hydroxylradikale (•OH) [92, 93]. ROS werden vorwiegend in Organellen wie dem endoplasmatischen Retikulum (ER), in Peroxisomen und besonders in Mitochondrien generiert [94]. Während der oxidativen Phosphorylierung wird Sauerstoff für die Wassersynthese durch Elektronenzugabe über die mitochondriale Elektronentransportkette (ETC) genutzt. Einige dieser Elektronen werden von molekularem Sauerstoff akzeptiert, um O₂⁻ zu bilden, das sich weiter zu H₂O₂ und •OH transformieren kann [93].
In physiologischem Kontext werden ROS als natürliche Antwort auf den normalen Sauerstoffstoffwechsel produziert [95] und spielen eine vitale Rolle in verschiedenen zellulären Signalwegen [96, 97]. Dröge und Holmstrom et al. berichteten, dass ROS zahlreiche Signalkaskaden aktivieren können, darunter den epidermalen Wachstumsfaktor (EGF)-Rezeptor, die Mitogen-aktivierte Proteinkinase (MAPK)-Kaskaden, den Transkriptionsfaktor Activator Protein-1 (AP-1) und den Nukleärfaktor-κB (NF-κB), und weiterhin am Prozess von Säugetierwachstum, Proliferation und Differenzierung teilnehmen [98, 99]. Weitere Studien zeigten, dass ROS auch Wundheilung [100], Überleben nach Hypoxie [101], intrazelluläre pH-Homöostase [102] und angeborene Immunität [103] regulieren.
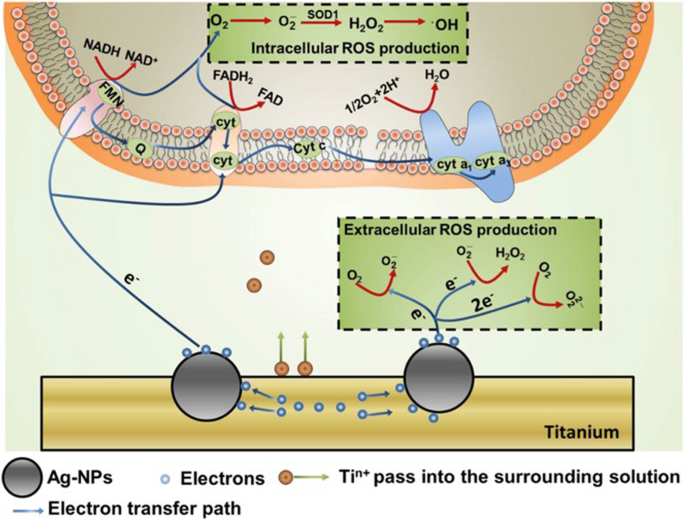
Dennoch kann die intrazelluläre ROS-Generierung nach NP-Exposition durch Induktion von ROS-Ausbrüchen in Zellen stark ansteigen [20] (Tabelle 1). Die hauptsächlichen mechanistischen Erklärungen für ROS-Ausbrüche sind, dass von NPs freigesetzte Metallionen die ROS-Überexpression durch Beeinträchtigung der mitochondrialen Atmung fördern [30, 104].
Von NPs freigesetzte Metallionen mischen sich in Redox-Cycling und Chemokatalyse via Fenton-Reaktion [H₂O₂ + Fe²⁺ → Fe³⁺ + HO⁻ + •OH] oder Fenton-ähnliche Reaktion [Ag⁺ H₂O₂ + H⁺ = Ag⁺ + •OH + H₂O] [23, 105, 106]. Das dissoziierte Metallion (z. B. Ag⁺) verursacht auch zelluläre Enzymdeaktivierung, Membranstrukturstörung [31, 107], gestörten Elektronentransfer [108], erschöpfte Redox-Potenzialwerte, reduzierte mitochondriale Membranpotenziale (MMP) [109] und verstärkt weiter die Akkumulation intrazellulärer ROS. NPs fördern auch die intrazelluläre ROS-Akkumulation durch Störung des Elektronentransferprozesses [32, 110], Erhöhung des NADP⁺/NADPH-Verhältnisses [30] und Beeinträchtigung der Mitochondrienfunktion [18]. NPs interferieren weiterhin mit der Expression oxidativer Stress-bezogener Gene wie soxS, soxR, oxyR, ahpC [58]; Antioxidantien-Genen wie sod1 und gpx1 [111, 112]; und dem NADPH-Produktions-bezogenen Gen met9 [30]. Die Instabilität in der Expression oxidativer und antioxidativer Gene durch NPs beschleunigt die intrazelluläre ROS-Akkumulation.
Interessanterweise ist die erhöhte ROS-Produktion stark mit bestimmten Größen und Formen von NPs assoziiert [113, 114]. Zum Beispiel trugen TiO₂-NPs zur intrazellulären ROS-Generierung bei, was zu Nukleinsäure- und Proteinschäden führte [10]. Liao et al. fanden, dass 10 nm TiO₂-NPs höhere Genotoxizität als andere getestete Größen aufwiesen und daher mehr ROS-Generierung induzieren konnten [115]. In einem anderen Fall förderten Se-NPs die ROS-Produktion in Zellen, und der intrazelluläre ROS-Ertrag war stark mit dem Durchmesser der Se-NPs assoziiert; ein Durchmesser von 81 nm induzierte mehr ROS-Produktion als andere getestete Größen [113]. Cho et al. zeigten weiter, dass die Form von NPs ihre Kapazität zur ROS-Induktion stark beeinflusst. Tagblumen-nachahmende metallische Nanopartikel (D-NP) führten zu signifikant höherer ROS-Produktion als Nachtblumen-nachahmende metallische Nanopartikel (N-NP), was zu einem verstärkten Zellabtötungseffekt führte [114] (Abb. 1).
NPs können intrazelluläre ROS-Ausbrüche bei sehr niedrigen Konzentrationen induzieren (siehe Tabelle 1), z. B. kann Nano-C60 bei 1 µg/mL die Zellapoptose durch Induktion von oxidativem Stress signifikant erhöhen [26, 27]. Bemerkenswert ist, dass die meisten NPs einen dosisabhängigen Effekt aufweisen, wie für VO₂-NPs [60, 61] und CuO-NPs [74, 75] berichtet.
Katastrophale Folgen von NPs auf Zellen durch erhöhte ROS-Produktion
NPs, die in die Zelle eindringen, haben oft nachteilige Effekte. Die am besten unterstützte Erklärung für die Zytotoxizität von NPs ist, dass oxidativer Stress durch einen ROS-Ausbruch induziert wird. ROS-Ausbrüche durch NPs resultierten in oxidativer Modifikation von Biomakromolekülen, Schädigung zellulärer Strukturen, Entwicklung von Medikamentenresistenz, Genmutation und Kanzerogenese [116, 117]. Weiterhin haben ROS-Ausbrüche die normalen physiologischen Funktionen von Zellen verändert, wie im Fall von Entzündungsauslösung, was letztlich Zellfunktionen blockiert und den Organismus schädigt [23, 118, 119]. Generell werden NPs zuerst an der Zelloberfläche adsorbiert und gelangen dann durch die Membran in die Zelle, wo sie ROS-Generierung induzieren [36]. Aufgrund seines starken Oxidationspotenzials ist ROS hochstressig für die Zelle [46] und greift nahezu alle Biomolekültypen an, einschließlich Kohlenhydrate, Nukleinsäuren, ungesättigte Fettsäuren, Proteine, Aminosäuren und Vitamine [36, 120, 121] (Abb. 2).
ROS führt zu Lipidperoxidation und Membranstrukturschädigung
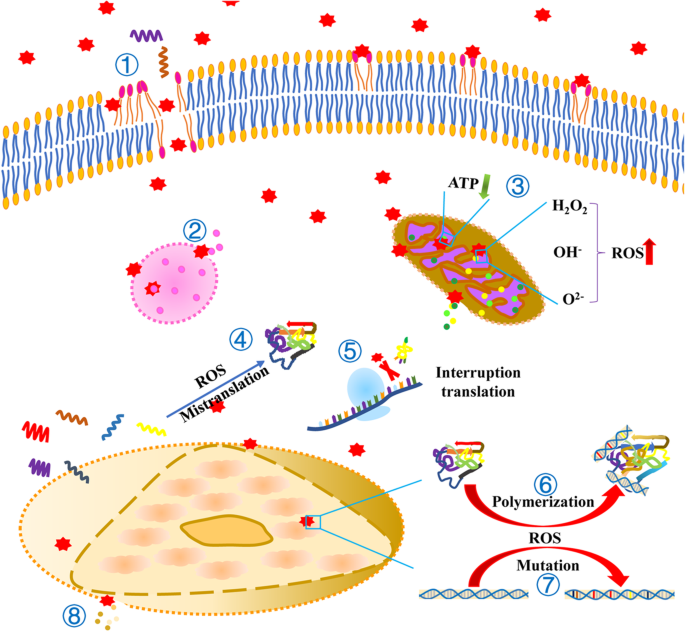
Lipide, besonders ungesättigte Fettsäuren, sind wichtige intrazelluläre Makromoleküle, die Schlüsselrollen in Struktur und Funktion der Zellmembran spielen. NPs werden stark von der Zellmembran angezogen, wo sie ROS generieren und zur Lipidperoxidation der äußeren Membran führen. Der veränderte Fettsäuregehalt der Zellmembran kann zu erhöhter Zellpermeabilität führen, was den unkontrollierten Transport von NPs aus der extrazellulären Umgebung in das Zytoplasma ermöglicht, wo zelluläre Schäden fortschreiten [76, 122].
Intrazelluläre NPs induzieren die nächste Runde von ROS-Ausbrüchen. Überlastete ROS führen zum Reißen von Organellmembranen, Leckage von Organellinhalten [52, 123], Inaktivierung von Zellrezeptoren [124], Freisetzung von Lactatdehydrogenase (LDH) und weiter irreversibler Zellschädigung [125].
ROS greift Proteine an und führt zu funktionaler Inaktivierung
ROS greift hydrophobe Reste von Aminosäuren an, was zum Bruch von Peptidbindungen und Beeinträchtigung der Proteinfunktion beiträgt [126–128]. Carbonylierung ist ein weiteres Merkmal von Proteinen unter oxidativem Stress [129]. Carbonylierte Proteine bilden Aggregate, die chemisch irreversibel sind und nicht über Proteasomen abgebaut werden können, was zum permanenten Funktionsverlust dieser Proteine führt [130, 131]. Gurunathan et al. [132] zeigten, dass PtNPs die ROS-Generierung verstärken und carbonylierte Proteine erhöhen, was Osteosarkom-Proliferation hemmte und zur Apoptose beitrug. In einem Fall hatten verbrennungs- und reibungsabgeleitete Nanopartikel (CFDNPs) sich im Gehirn junger Erwachsener mit Alzheimer angesammelt, was wahrscheinlich ROS-Generierung förderte, was zu Protein-Fehlfaltung, Aggregation und Fibrillierung führte [133]. Weiterhin zeigten Pelgrift et al., dass Mg-NPs Gentranskription inhibieren oder Proteine direkt schädigen können [10].
ROS-induzierte Genmutation
Nukleinsäuren, einschließlich DNA und RNA, sind essenziell für Zellfunktion, Wachstum und Entwicklung, und ihre Komponentennukleotide sind verwundbare Targets von ROS [134–136]. Aufgrund ihres niedrigen Redoxpotenzials können ROS direkt mit Nukleobasen reagieren und diese modifizieren [137]. Zum Beispiel kann ROS Guanin zu 8-Oxo-7,8-dihydroguanin (8-oxoG) [138] und Adenin zu 1,2-Dihydro-2-oxoadenin (2-oxoA) [139] oxidieren. Diese Basenmodifikationen führen zu DNA-Schäden [140]. Aufgrund ihres genotoxischen Potenzials und ihrer Kapazität zur ROS-Induktion [141] induzieren NPs signifikant Einzel- und Doppelstrangbrüche der DNA [142, 143], Chromosomenschäden und aneuploide Genereignisse [144].
Die erhöhte ROS-Produktion ist die Hauptursache für Gen-Fehlcodierung, Aneuploidie, Polyploidie und Aktivierung von Mutagenese in Zellen, die NPs ausgesetzt sind [145–148]. Unter den Nukleotidpools ist Guanin am verwundbarsten und wird leicht durch ROS zu 8-oxoG oxidiert [149]. Der erhöhte 8-oxo-dG-Spiegel in DNA führt zum Mismatch von DNA-Basen [150]. Ebenso verursacht die Inkorporation von A:8-oxoG eine erhöhte Rate an G:C → T:A schädlichen Transversionsmutationen [151, 152]. Das Verhältnis von G:C → T:A Transversion zu G:C → A:T Transitionsmutation wurde als Index zur Quantifizierung oxidativer DNA-Schäden verwendet [153].
Die durch NPs induzierte ROS-Generierung resultierte in Akkumulation von DNA-Schäden, die die Entwicklung von Mutagenität [154], Onkogenese [155], Multidrug-Resistenz [156, 157], Altern und Immunflucht [158] antreiben. Jin et al. zeigten, dass die Überproduktion von ROS die Mutagenese von DNA-bindenden Transkriptionsregulator-Genen dramatisch erhöhte, was zu beschleunigtem Antibiotika-Efflux führte [159], was wiederum die Multi-Antibiotika-Resistenz von Bakterien förderte [34]. Giannoni et al. berichteten, dass mitochondriale DNA-Mutationen mit steigendem intrazellulärem ROS auftraten und die Aktivität des ETC-Komplex I weiter schädigten, was zu mitochondrialer Dysfunktion führte [160, 161].
Durch NPs induzierte DNA-Schäden hemmen Aminosäuresynthese, Replikation [162] und verursachen aberrante Akkumulation von p53 [163] und Rab51-Proteinen [82, 142]. DNA-Schäden können auch die Zelle verzögern oder vollständig blockieren [164]. Zellen mit beschädigter DNA verlieren die Kapazität für Wachstum und Proliferation [165] und können schließlich zum Zelltod führen [166] (Abb. 3).
Erhöhte ROS-Produktion induziert Zellschäden und Krankheitsentstehung
NP-Zytotoxizität assoziiert mit oxidativem Stress, endogener ROS-Produktion und Erschöpfung intrazellulärer Antioxidantien-Pools. Der erhöhte oxidative Stress führt zu oxidativen Schäden an Biomakromolekülen, was die normale Zellfunktion weiter beeinträchtigt und zum Auftreten und Fortschreiten verschiedener Krankheiten beiträgt [167].
NPs induzieren Membranschäden und verstärken den Transport von NPs in das Zytoplasma. NPs konzentrieren sich in Lysosomen, Mitochondrien und dem Zellkern, was katastrophale Folgen für die Zelle hat [168, 169]. Es wurde berichtet, dass NPs die Adenosintriphosphat (ATP)-Generierung reduzieren [89], Glutathion erschöpfen, Protein-Fehltranslation induzieren [170], Lysosomen zerreißen [171] und die Bindung der ribosomalen Untereinheit an Transfer-RNA (tRNA) inhibieren. Diese zellulären Ereignisse deuten auf einen Kollaps fundamentaler biologischer Prozesse in der Zelle hin und führen zu signifikant verringerter Zellvitalität [47]. Singh und Scherz-Shouval et al. berichteten, dass NPs zytoskelettale Funktionen durch ROS-Induktion stören und Autophagie- und Apoptoseprozesse in Zellen aktivieren [89].
NPs gelangen über verschiedene Routes in den Körper, z. B. durch Haut, Lunge oder Darmtrakt (Abb. 4a) und können vielfältige toxikologische Effekte haben und biologische Reaktionen wie Entzündung und Immunantwort induzieren [172–174]. In einem Fall verursachte Exposition von Zellen gegenüber Silica-NPs, dass Makrophagen große Mengen Interleukin-1β (IL-1β) sezernierten, was letztlich zum Zelltod führte [175]. Gao et al. berichteten, dass pulmonale Entzündung bei Mäusen nach Exposition gegenüber Kohlenstoffnanoröhren erheblich höher war, was alveoläre Makrophagen aktivieren und starke Entzündungsreaktionen induzieren konnte [176]. In einer anderen Studie litten Meerschweinchen, die ZnO-NPs ausgesetzt waren, unter Lungenschäden, was zu Abnahme der Gesamtlungenkapazität und Vitalkapazität führte [177–179].
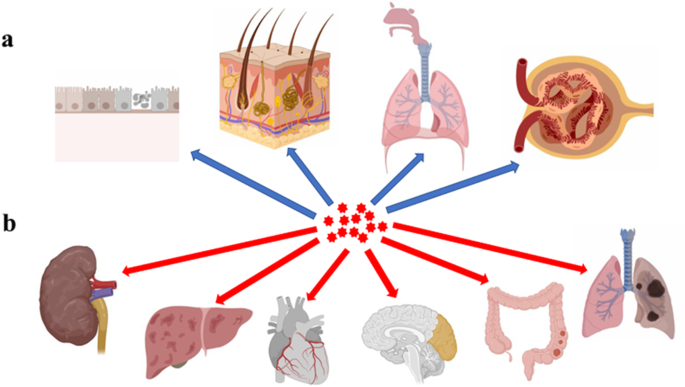
ZnO-NPs induzierten auch schwere Verletzungen der alveolären Epithelbarriere und verursachten Entzündungen in der menschlichen Lunge [180]. In einem anderen Fall verursachten NPs, die in den Darm aufgenommen wurden, Entzündung und Degradation der Darmmukosa [181]. Shubayev et al. merkten an, dass Mg-NPs die Migration von Makrophagen zum Nervensystem durch Degradation der Blut-Hirn- und Blut-Nerv-Schranken in MMP-abhängiger Weise verstärkten [182]. Weiterhin zeigten Mäuse, die Kohlenstoffnanoröhren einatmeten, Immunsuppression und unterdrückte Antikörperantwort in naiven Milzzellen [183]. Schließlich verursachten Cd-NPs einen schweren Abfall der Blutzellen-Monocyten-Vitalität, was letztlich zu Immundefizienz führte [184].
Zusätzlich zu den oben genannten Pathologien wurde der hochvariable ROS-Spiegel als Hauptursache für die Entwicklung zahlreicher menschlicher Krankheiten identifiziert. Tretyakova und Liou et al. zeigten, dass oxidierte DNA DNA-Protein-Konjugate bildet, die sich in Herz und Gehirn anreichern und zum Auftreten von Krebs, altersbedingten Krankheiten und chronischer Entzündung beitragen [185, 186]. Andersen [187] schloss, dass Diabetes, kardiovaskuläre und neurodegenerative Erkrankungen stark mit ROS-Ungleichgewicht zusammenhängen. Zudem zeigten Pérez-Rosés et al., dass erhöhte ROS die Entwicklung von Alzheimer- und Parkinson-Krankheit fördern [188].
Es wurde weiter berichtet, dass NPs die Apoptose von Brustkrebszellen fördern [35] und malignes Gewebe und Pathogene durch ROS-Generierung zerstören [189, 190]. Allerdings wurde ROS auch gefunden, die Proliferation sowohl normaler als auch krebsartiger Zellen induziert, Mutationen stimuliert und Kanzerogenese in normalen Zellen sowie Multidrug-Resistenz in Krebszellen initiiert [191, 192]. Handy et al. fanden, dass Fische, die Kohlenstoffnanoröhren ausgesetzt waren, Granulome in der Lunge und Lebertumoren bei verlängerter Expositionszeit aufwiesen [193]. Einige NPs verursachten Multiorganversagen, primär betreffend Herz, Lunge, Nieren und Leber. TiO₂-NPs zeigten reduziertes Körpergewicht, Milzläsionen, Blutgerinnung im Atmungssystem, Nekrose und Fibrose in Leberzellen sowie alveoläre Septumverdickung [194, 195]. In einer Studie verhinderten NPs auch die Stammzelldifferenzierung, was Organschäden verschlimmerte [196]. Weitere Forschung berichtete, dass NPs die Spermienqualität verringerten [197] und Exposition von Spermien gegenüber Kohlenstoff-NPs ihre Befruchtungsfähigkeit beeinträchtigte und die Embryonalentwicklung bei Purpur-Seeigeln störte [198]. Zunehmende Evidenz zeigt toxikologische Effekte von NPs auf Mikroorganismen, Algen, Nematoden, Pflanzen, Tiere und Menschen spezifisch [22, 199, 200] (Abb. 4b).
Neue NP-Typen mit weniger oder keiner Zytotoxizität
NPs besitzen biomedizinische Eigenschaften, die sie wertvoll machen (z. B. als antibakterielle und antikrebswirksame Mittel [26–28]). Ihr Hauptwirkmechanismus ist die Fähigkeit, die ROS-Produktion in Zellen zu erhöhen; jedoch macht diese Eigenschaft sie auch toxisch, indem sie Genmutationen, Apoptose und sogar Kanzerogenese verursachen [45, 49, 58]. Folglich besteht dringender Bedarf an neuen NPs, die ihre erforderlichen Eigenschaften behalten, ohne übermäßige ROS-Produktion zu verursachen. Neuere Studien berichteten über neuartige NP-Typen, die intrazelluläre ROS entfernen können. Diese fallen in zwei Klassen: (1) NPs, die ROS abfangen können [77], und (2) NPs, die mit zusätzlichen Materialien beschichtet sind, um ihre Zytotoxizität zu verringern [87].
Panikkanvalappil et al. zeigten, dass Pt-NPs den Doppelstrangbruch der DNA durch ROS-Abbau inhibieren [201]. In einem anderen Fall modulierten Mn₃O₄-NPs das zelluläre Redox, was zum Schutz von Biomakromolekülen gegen oxidativen Stress führte [77]. Weiterhin ist CeO₂-NP ein neuartiges Agens, das Zellen und Gewebe durch seine freiradikalfängende Kapazität vor oxidativem Schaden schützt [79, 202].
H₂O₂ ist das Hauptnebenprodukt von NP-Zell-Interaktionen. H₂O₂ zerstört wichtige Biomoleküle einschließlich Proteine, Lipide und Nukleinsäuren. Wenn Zellen jedoch mit spezialisierten MNPs beschichtet mit Mercaptopropionsäure (MPA-NPs) oder aminiertem Siliziumdioxid (SiO₂-MNPs) behandelt wurden, wurde solcher Schaden nicht beobachtet [203, 204]. Ebenso hat GO, beschichtet mit Polyvinylpyrrolidon (PVP), weniger toxische Effekte auf dendritische Zellen (DCs), T-Lymphozyten und Makrophagen als ohne Beschichtung. PVP-GO reduzierte die Apoptose von T-Lymphozyten und steigerte sogar die Aktivität von Makrophagen [205]. Pt-beschichtete AuNRs (PtAuNRs) behalten die Wirksamkeit traditioneller Goldnanostäbe (AuNR) bei und können Zelltod gewünschter Zellen auslösen, während sie ROS abfangen, wodurch gesunde, unbehandelte Zellen vor indirektem Tod durch ROS-Produktion geschützt werden [87].
Schlussfolgerungen und Ausblick
NPs mit einzigartigen physikochemischen Eigenschaften (z. B. ultra-kleine Größe, großes Oberflächen-Massen-Verhältnis, hohe Reaktivität) machen sie in verschiedenen Anwendungen hochbegehrt. Engineered NPs für kommerzielle Zwecke nehmen rapide zu. Deshalb hat die Biosicherheit von NPs mehr öffentliche Aufmerksamkeit erlangt. In diesem Review fassten wir die Mechanismen und Verantwortlichkeiten der ROS-Bildung durch NPs auf zellulärer Ebene sowie jüngste Fortschritte der ROS-bezogenen NP-Toxizität im biomedizinischen Bereich zusammen und hoben das aufstrebende Feld zellfreundlicher NPs hervor. Die durch NPs induzierte ROS-Generierung ist assoziiert mit ihrer Größe, Morphologie, Oberfläche und Zusammensetzung. Zudem hat ROS bio-multifunktionale Rollen in Zellbiologie und Biomedizin sowie als Schlüsselmediator zellulärer Signale, einschließlich Zellapoptose, Vitalität und Differenzierung.
Um die Biosicherheit von NPs zu verbessern und ihren Einsatz im biomedizinischen Bereich zu beschleunigen, müssen jedoch einige Engpässe überwunden werden und viel Arbeit ist noch erforderlich. Erstens wird erwartet, dass Hochdurchsatz-Methoden (HTMs) entworfen werden, um die Bio-Toxizität von NPs effizient in vitro und in vivo zu detektieren. HTMs könnten Zeit und Ressourcen sparen, mehrere Parameter in einem System kombinieren und methodische oder systematische Fehler minimieren. Sie würden auch ein tiefes Verständnis der Beziehung zwischen NP-Eigenschaften und Zellreaktionen bieten, was helfen könnte, optimale Bedingungen zu identifizieren.
Zweitens sind die molekularen und zellulären Mechanismen der Bio-Toxizität von NP-induziertem ROS noch unklar. Es besteht Bedarf, die Mechanismen der ROS-Bildung durch NPs weiter zu erforschen, was mehr Informationen liefert, um die chemisch-physikalischen Eigenschaften von NPs zu modifizieren und die ROS-Generierung zu kontrollieren. Dies könnte Forschern helfen, neuartige Strategien zur Reduzierung der Gefahren von engineered NPs für die Beschleunigung ihrer klinischen und kommerziellen Translation im biomedizinischen Bereich zu entwickeln.
Drittens können NPs aufgrund ihrer strukturellen Eigenschaften frei über multiple Routen in den Körper eindringen, und die Anreicherung von NPs im Körper kann Entzündungen und Immunreaktionen induzieren, was zu Zellverletzungen oder -tod, Organdysfunktion und letztlich zur Stimulation zahlreicher Krankheiten wie Alzheimer, Parkinson, Leberentzündung und Dysembryoplasie führt. Diese Fragen sind mit der weitverbreiteten Nutzung von NPs dringender geworden.
Verfügbarkeit von Daten und Materialien
Alle während dieser Studie generierten oder analysierten Daten sind in diesem veröffentlichten Artikel [und seinen ergänzenden Informationsdateien] enthalten.
Abkürzungen
- •OH:
- Hydroxylradikal
- 2-oxoA:
- 1,2-Dihydro-2-oxoadenin
- 8-oxoG:
- 8-Oxo-7,8-dihydroguanin
- Ag NPs:
- Silbernanopartikel
- AP-1:
- Transkriptionsfaktor Activator Protein-1
- ATP:
- Adenosintriphosphat
- AuNR:
- Goldnanostäbe
- CFDNPs:
- Verbrennungs- und reibungsabgeleitete Nanopartikel
- DCs:
- Dendritische Zellen
- D-NP:
- Tagblumen-nachahmende metallische Nanopartikel
- EGF:
- Epidermaler Wachstumsfaktor
- ER:
- Endoplasmatisches Retikulum
- ETC:
- Mitochondriale Elektronentransportkette
- Fe₃O₄-PEG-G5-MMP2@Ce6:
- Fe₃O₄-Polyethylenglycol-Polyamidamin-Matrix-Metalloproteinase2@Chlorin e6
- H₂O₂:
- Wasserstoffperoxid
- HS-Fe-PEG-HER2 NPs:
- Hohle Siliziumdioxid-Fe-Polyethylenglycol-menschliche epidermale Wachstumsfaktor-Rezeptor-2-Nanopartikel
- LDH:
- Lactatdehydrogenase
- MMP:
- Mitochondriale Membranpotenziale
- MPA-NPs:
- MNPs beschichtet mit Mercaptopropionsäure
- NADP⁺/NADPH:
- Nicotinamidadenindinukleotidphosphat oxidiert/reduziert
- NF-κB:
- Nukleärfaktor-κB
- N-NP:
- Nachtblumen-nachahmende metallische Nanopartikel
- NPs:
- Nanopartikel
- O₂⁻:
- Reaktives Superoxid-Anionenradikal
- pDNA-PEI-CeO NPs:
- pDNA-Polyethylenimin-CeO-Nanopartikel
- PtAuNRs:
- Pt-beschichtete AuNRs
- PVP:
- Polyvinylpyrrolidon
- ROS:
- Reaktive Sauerstoffspezies
- SiO₂-MNPs:
- MNPs mit aminiertem Siliziumdioxid
- tRNA:
- Transfer-RNA
Nanomaterialien
- ROS 2 und DDS Interoperabilität: Praktischer Leitfaden für nahtlose Integration
- Molybdän in der Medizin: Fortschrittliche Anwendungen in Brustbildgebung und Knochenreparatur
- Wolfram in der Legierungskonstruktion: Anwendungen in Stahl, Hartmetall und Schwerlegierungen
- Diamants außergewöhnliche Rolle in der modernen Medizin: Von chirurgischen Instrumenten bis Nanomedizin
- IBM Und Warwick Wissenschaftler Erfassen Erstes Hochauflösendes Bild Von Triangulene, Einem Hochreaktiven Dreieckigen Molekül
- Augmented Reality: Connected Field Service transformieren
- IoT revolutioniert Field Service: Predictive Maintenance & höherer ROI
- Machine Learning beschleunigt Pipeline-Sicherheit: Echtzeit-Fehlererkennung spart 10 Mio. $
- Schnelle vs. langsame Oxidation: Was unterscheidet sie?
- Warum Vor-Ort-Sauerstoffgenerierung ein Gamechanger für industrielle Effizienz ist