



Wiederherstellung von miR-133a-3p oder Reduktion von PSAT1 begrenzt endothelschadengetriebene intrakranielle Aneurysmen durch Hemmung des GSK3β/β-Catenin-Signalwegs
Zusammenfassung
Die funktionelle Rolle von microRNA-133a-3p (miR-133a-3p) bei intrakraniellen Aneurysmen (IA) ist unklar. Ziel dieser Studie war es, die regulatorische Rolle von miR-133a-3p auf die durch vaskuläre Endothelschädigung induzierte IA über den Phosphoserin-Aminotransferase-1 (PSAT1)/Glykogensynthase-Kinase-3β (GSK3β)/β-Catenin-Signalweg zu untersuchen. Normale intrakranielle Arteriolen-Gewebe und IA-Gewebe wurden von Patienten mit Hirntrauma bzw. IA gewonnen. Die Expression von miR-133a-3p, PSAT1, GSK3β und β-Catenin in den Geweben wurde mittels RT-qPCR und Western Blot bestimmt. Humane IA-Endothelzellen (ECs) wurden kultiviert und mit miR-133a-3p-Mimik und si-PSAT1 behandelt, um ihre Funktion in EC-Migration, Apoptose und Proliferation zu bestimmen. Die Expression von miR-133a-3p, PSAT1, GSK3β, β-Catenin, Ki-67, Cyclin D1, Bax und Bcl-2 in ECs wurde per RT-qPCR oder Western Blot analysiert. Zudem wurde ein IA-Rattenmodell etabliert, um pathologische Veränderungen und die Expression von miR-133a-3p, PSAT1, GSK3β, β-Catenin, VEGF und MMP-9 in IA-Geweben in vivo zu detektieren. Die miR-133a-3p-Expression korrelierte mit Anzahl und Größe der IA. miR-133a-3p war in IA herunterreguliert, während PSAT1, GSK3β und β-Catenin hochreguliert waren. Die Wiederherstellung von miR-133a-3p und die Depletion von PSAT1 linderten pathologische Veränderungen; reduzierten PSAT1, GSK3β und β-Catenin in IA; unterdrückten Apoptose und förderten Proliferation und Migration von IA-ECs sowie reduzierten VEGF und MMP-9 in IA-Geweben in vivo. Die Studie legt nahe, dass die Überexpression von miR-133a-3p oder die Downregulation von PSAT1 Endothelzellschäden hemmt und die Endothelzellproliferation durch Inhibition des GSK3β/β-Catenin-Signalwegs in IA fördert. miR-133a-3p könnte ein potenzieller Biomarker und therapeutisches Target für IA sein.
Darstellung der Hypothese
In dieser Studie spekulierten wir, dass die miR-133a-3p/PSAT1-Achse die durch Endothelzellschaden induzierte IA durch Modulation des GSK3β/β-Catenin-Signalwegs beeinflussen könnte.
Prüfung der Hypothese
Zur Verifizierung dieser Hypothese sammelten wir klinische Proben, humane IA-Endothelzellen (ECs) und etablierten IA-Rattenmodelle, um die Funktionen von miR-133a-3p und PSAT1 im IA-Prozess zu elucidieren.
Implikationen der Hypothese
Unsere Studie bestätigt die Hypothese, dass die Überexpression von miR-133a-3p oder die Downregulation von PSAT1 Endothelzellschäden hemmt und die Endothelzellproliferation durch Inhibition des GSK3β/β-Catenin-Signalwegs in IA fördert. Diese Ergebnisse liefern neue Einblicke in eine neuartige zielgerichtete Therapie für IA.
Einleitung
Intrakranielle Aneurysmen (IA) sind zerebrovaskuläre Erkrankungen, die durch abnorme Arterienerweiterungen im Gehirn sowie subarachnoidale Blutungen (SAH) durch Aneurysmaruptur gekennzeichnet sind und mit hoher Letalität und Morbidität einhergehen [1]. Trotz der Schwere der Erkrankung ist die Pathogenese von IA nicht vollständig geklärt [2]. IA tritt selten familiär auf, wird jedoch allgemein als Folge erworbener vaskulärer Schäden durch Hypertonie, Rauchen und andere traditionelle Risikofaktoren angesehen [3]. Endovaskuläres Coiling oder mikrochirurgisches Clipping werden zur Prävention zukünftiger Rupturen bei unrupturierten Aneurysmen bei Patienten mit hohem Rupturrisiko eingesetzt [4]. Trotz erheblicher Fortschritte in der IA-Chirurgie bleibt die postoperative Erholung bei IA-Patienten oft unzureichend [5]. Die schwierige Behandlungssituation macht es notwendig, den Mechanismus weiter zu erforschen und neue therapeutische Strategien zu finden.
MicroRNAs (miRNAs) sind nicht-kodierende RNAs, die die Expression von Zielgenen durch Inhibierung der Translation auf post-transkriptioneller Ebene oder durch Vermittlung von mRNA-Abbau modulieren [6]. Es wurde gezeigt, dass miR-133a-3p als Tumorsuppressor in verschiedenen malignen Neoplasien wirkt und die Überexpression von miR-133a-3p das Wachstum von kolorektalen Krebszellen (CRC) hemmen kann [7]. Eine frühere Studie zeigte, dass miR-133a-3p durch Blockierung der autophagie-vermittelten Glutaminolyse das Wachstum und die Metastasierung von Magenkrebs weiter unterdrückt [8]. Eine weitere Studie belegte die Beteiligung von miR-133a-3p an der Regulation der Herzentwicklung und kardialen Hypertrophie [9]. Eine Studie demonstrierte, dass die Hochregulation von miR-195-5p Angiogenese und Cisplatin-Resistenz im Ovarialkarzinom durch Suppression des PSAT1-abhängigen GSK3β/β-Catenin-Signalwegs verringert [10]. Eine andere Studie berichtete, dass miR-365 Zellinvasion und -wachstum im ösophagealen Plattenepithelkarzinom (ESCC) durch Modulation von PSAT1 repressiert [11]. PSAT1 ist ein an der Serinbiosynthese beteiligtes Enzym, ursprünglich aus Schafsgehirnen gereinigt und in vielen Geweben hoch exprimiert [12]. Es ist dokumentiert, dass PSAT1 den Zellzyklusfortschritt im Brustkrebs durch Modulation des GSK3β/β-Catenin-Signalwegs vermittelt [13]. Liu et al. wiesen zudem nach, dass PSAT1 die Entwicklung von ESCC beeinflusst und ein schlechtes Überleben vorhersagt; daher könnte es ein vielversprechendes Target für antikrebs Therapeutika sein [14]. Vor diesem Hintergrund zielte diese Studie darauf ab, einen neuen Ansatz für die funktionelle Rolle der miR-133a-3p/PSAT1/GSK3β/β-Catenin-Achse bei IA beizutragen.
Materialien und Methoden
Ethikstatement
Die Studie wurde vom Institutional Review Board des First Teaching Hospital der Tianjin University of Traditional Chinese Medicine genehmigt. Alle Teilnehmer unterschrieben eine Einverständniserklärung. Alle Tierversuche entsprachen dem Guide for the Care and Use of Laboratory Animals internationaler Komitees.
Studienteilnehmer
Von Januar 2016 bis März 2018 wurden Fälle von SAH durch IA, die in der Neurochirurgie des First Teaching Hospital der Tianjin University of Traditional Chinese Medicine behandelt wurden, ausgewählt. Pathologische Proben von 75 IA-Fällen, die durch Mikrochirurgie gewonnen wurden, wurden gesammelt und als IA-Gruppe klassifiziert (29 Männer, 46 Frauen, 31–55 Jahre, Durchschnitt 44,98 ± 6,79 Jahre). Patienten mit Hirntrauma, die zur gleichen Zeit in der Neurochirurgie desselben Krankenhauses behandelt wurden, dienten als Kontrollgruppe. Ebenfalls wurden 75 normale intrakranielle Arteriolen-Gewebe durch traumatische Operationen oder innere Dekompression gewonnen (43 Männer, 32 Frauen, 34–56 Jahre, Durchschnitt 48,14 ± 8,68 Jahre). Patienten mit Hypertonie, Diabetes oder Tumoren in der Vorgeschichte wurden ausgeschlossen. Es gab keine signifikanten Unterschiede in Geschlecht und Alter zwischen IA-Gruppe und Kontrollgruppe (beide P > 0,05).
Probenbehandlung und -lagerung
Nach chirurgischer Resektion wurden einige Proben beider Gruppen mit Formaldehyd fixiert, in abgestuftem Alkohol dehydriert und in Paraffin eingebettet. Anschließend wurden sie für Hämatoxylin-Eosin (HE)-Färbung und immunhistochemische Färbung geschnitten. Einige Proben wurden schnell in flüssigem Stickstoff platziert und dann in einen -80 °C Gefrierschrank für Western Blot und RT-qPCR überführt. Einige Proben wurden mit Glutaraldehyd für Elektronenmikroskopie fixiert, andere für die Isolierung von ECs verwendet.
Elektronenmikroskopie
Proben wurden mit 3 % Glutaraldehyd fixiert und anschließend mit 1 % Osmiumtetroxid nachfixiert. Dehydrierung erfolgte mit Aceton, Einbettung in Epon812, Schnitt in 3 µm semi-dünne Schnitte. Schließlich wurden sie mit Uranylacetat und Bleicitrat doppelt kontrastiert und mit einem H-600IV Transmissionselektronenmikroskop (Hitachi, Tokio, Japan) beobachtet.
HE-Färbung
Die Paraffinschnitte wurden 30 min bei 60 °C getrocknet. Danach wurden die Gewebeschnitte in Xylol entparaffiniert, in abgestuftem absoluten Alkohol dehydriert und mit phosphatgepufferter Kochsalzlösung (PBS) gereinigt. Die Schnitte wurden mit Hämatoxylin gefärbt, kurz in Ammoniak behandelt, 2 min mit Eosin gegengefärbt, dehydriert und geklärt. Anschließend wurden sie mit neutralem Gummi getropft und mit Deckglas verschlossen. Schließlich wurden sie mit einem Mikroskop (Nikon, Tokio, Japan) beobachtet und dokumentiert.
Immunhistochemische Färbung
Das Immunhistochemie-Kit stammte von Zymed Laboratories (San Francisco, CA, USA). Die Paraffinschnitte wurden entparaffiniert und hydratisiert, 3 × 5 min in Xylol getaucht, 2 × 3 min in 100 % absolutem Alkohol und nacheinander in 95–75 % Alkohol für 3 min eingeweicht. Nach der Entparaffinierung wurden die Schnitte 15 min mit 3 % H2O2 inkubiert, um die endogene Peroxidase-Aktivität zu eliminieren. Die Schnitte wurden mit Blockierlösung getropft und 15 min mit normaler Ziegenserum-Arbeitslösung inkubiert, dann mit Primärantikörper gegen Matrix-Metalloprotease (MMP)-9 (5 µg/mL) und vaskulären Endothelwachstumsfaktor (VEGF) (1:250, Abcam, Cambridge, MA, USA) (PBS für Negative Control) inkubiert für 1–2 h. Die Schnitte wurden 30–60 min mit biotinyliertem Sekundärantikörper-Arbeitslösung nachinkubiert. Dann wurden sie mit Streptavidin/Peroxidase-Arbeitsflüssigkeit (mit Peroxidase markiert), frisch hergestelltem Diaminobenzidin (DAB) getropft, gegengefärbt und blockiert. Das Bild wurde mit dem Nikon SPOT FlexTM Imaging System erfasst. Die Fläche der MMP-9- und VEGF-Proteinexpression wurde mit immunhistochemischer quantitativer Analysesoftware gemessen. Fünf hochauflösende Sichtfelder wurden zufällig im Akkumulationsbereich positiver Zellen jedes Proben detektiert, und der durchschnittliche Absorptionswert jedes Bildschirms diente als Mittelwert für die statistische Analyse.
Isolierung und Kultur von ECs
ECs wurden aus normalen intrakraniellen Arteriolen-Geweben und IA-Geweben isoliert und kultiviert. Das Gewebe wurde in 3 mm2 Fragmente geschnitten und 25 min in 0,1 % Collagenase B / 0,1 % Dispase (Roche, Basel, Schweiz) inkubiert. Das Gewebe wurde abgelöst, 2 min mit einer 2-mL-Pipette trituriert und durch ein 100-µm-Sieb (BD Biosciences, NJ, USA) filtriert, um ECs zu isolieren. Die Zellsuspension wurde zentrifugiert und in Kulturmedium MV2 mit Wachstumsfaktoren und 20 % fötalem Kälberserum (PromoCell, Heidelberg, Deutschland) resuspendiert. Anschließend wurden die Zellen auf Fibronektin (Sigma Aldrich Inc., St. Louis, MO, USA)-beschichteten Schalen mit einer Dichte von 104 Zellen/cm2 (1 µg/cm2) ausgesät und 1 Tag mit 5 % CO2 kultiviert. Am Tag nach der Aussaat wurden die Zellen mit PBS gespült, um nicht anhaftende Zellen zu entfernen, und in frisches Medium überführt. Bei Erreichen von ca. 80–100 % Konfluenz wurden die Kulturen durch Immunoseparation mit Ulex europaeus Agglutinin I (UEA)-beschichteten (Vector Laboratories, Ltd., Peterborough, UK) Perlen (Dynabeads M-450 Tosylaktiviert, Oxoid, Hampshire, UK) gereinigt, um reine ECs zu erhalten. An Lektin-beschichtete Perlen gebundene ECs wurden mit einem magnetischen Partikelkonzentrator gesammelt, während ungebundene Zellen durch zweimaliges Waschen mit Basalmedium entfernt wurden. UEA-positive Zellen wurden in Kulturmedium resuspendiert und auf Fibronektin-beschichteten Schalen ausgesät, um ihre Adhäsion und Wachstum zu verbessern. Die Kulturen erreichten innerhalb von 4–6 Tagen Konfluenz.
Identifikation von ECs
ECs wurden durch immunzytochemische Färbung mit einem zellulären CD31-Antikörper und einem FVII-Faktor-assoziierten Antigen identifiziert. Die Zellen wurden zweimal mit PBS gewaschen, mit 4 % Paraformaldehyd fixiert, 10–15 min mit 3 % H2O2 inkubiert zur Elimination endogener Peroxidase-Aktivität und anschließend 10 min mit 0,1 % Triton X-100 permeabilisiert. Die Zellen wurden mit spezifischem Primärantikörper getropft: Faktor VII (1:200), CD31 (1:400, Roche, Basel, Schweiz) und über Nacht bei 4 °C inkubiert. Dann wurden die Zellen mit Immunglobulin G (1:50), markiert mit Peroxidase-konjugiertem Sekundärantikörper, getropft. Die Zellen wurden 45 min bei 37 °C inkubiert und mit DAB unter Lichtschutz 4 min entwickelt. Die Farbentwicklung wurde mit destilliertem Wasser beendet und das Foto unter dem Mikroskop beobachtet. Die Zellen wurden unter einem Fluoreszenz-Invertphasenkontrastmikroskop beobachtet, und positive Zellen sowie Gesamtzellzahl wurden zufällig aus 10 Sichtfeldern gezählt. Positive Färberate = (Anzahl positiver Zellen / Gesamtzahl der Zellen) × 100 %. Eine entsprechende NC-Gruppe wurde etabliert, wobei der Primärantikörper durch PBS ersetzt wurde, alle anderen Schritte wurden wie oben durchgeführt.
Gruppierung und Transfektion der Zellen
Um die Effekte zwischen miR-133a-3p und PSAT1 auf IA-ECs zu untersuchen, wurden ECs in folgende Gruppen eingeteilt: Kontrollgruppe (normale vaskuläre ECs ohne Transfektion), IA-Gruppe (IA-vaskuläre ECs ohne Transfektion), Mimik-NC-Gruppe (transfiziert mit miR-133a-3p-Mimik-NC), miR-133a-3p-Mimik-Gruppe (transfiziert mit miR-133a-3p-Mimik), si-NC-Gruppe (transfiziert mit si-PSAT1-NC), si-PSAT1-Gruppe (transfiziert mit si-PSAT1) und miR-133a-3p-Mimik + oe-PSAT1-Gruppe (transfiziert mit miR-133a-3p-Mimik und oe-PSAT1). Mimik-NC, miR-133a-3p-Mimik, si-PSAT1, si-NC und oe-PSAT1 wurden von GenePharma Co., Ltd. (Shanghai, China) entworfen und synthetisiert. Transfektion erfolgte streng nach Anweisung des LipofectamineTM 2000 Transfektionsreagenz (Thermo Fisher Scientific, MA, USA).
Durchflusszytometrie
Das Medium in der Kulturschale wurde verworfen, die Zellen zweimal mit PBS gespült. Zellen wurden mit 0,25 % Trypsin abgelöst, 5 min bei 800 rpm zentrifugiert und in 1× Binding Buffer resuspendiert, Zelldichte auf 1 × 10⁷ Zellen/mL eingestellt. Die Zellsuspension (100 µL) wurde 20 min mit 5 µL Propidiumiodid (PI, 20 µg/mL) und Annexin V-FITC inkubiert, dann mit 400 µL 1× Binding Buffer gemischt. Ein Durchflusszytometer (BD FACSArial I Zellsorter) wurde zur Detektion der Zellapoptose innerhalb von 1 h genutzt. Ergebnisse: linker unterer Quadrant (Q4) = lebende Zellen (FITC−/PI−), rechter unterer Quadrant (Q3) = frühe apoptotische Zellen (FITC+/PI−), rechter oberer Quadrant (Q2) = späte apoptotische und nekrotische Zellen (FITC+/PI+); Apoptoserate = frühe Apoptose % (Q3) + späte Apoptose % (Q2).
MTT-Assay
Zellen wurden mit Trypsin abgelöst, um Zellsuspension herzustellen. Zellen wurden unter Inversmikroskop gezählt. Zellkonzentration wurde auf 5 × 10⁴ Zellen/mL eingestellt. Zellen wurden in 96-Well-Platten ausgesät. Nach 48 h wurden 20 µL MTT-Lösung pro Well für 4 h inkubiert. MTT in jedem Well wurde mit 150 µL DMSO gelöst. Der optische Dichte (OD) Wert der ECs wurde bei 570 nm gemessen. Die Proliferationsrate der ECs wurde anhand des OD-Werts berechnet.
Kratztest (Scratch Test)
Zellen jeder Gruppe wurden in 24-Well-Platten mit 2 × 10⁵ Zellen/Well ausgesät. Drei parallele Wells pro Gruppe. Bei Erreichen von ca. 90 % Konfluenz wurde die Zellebene mit einer sterilen 1-mL-Mikropipettenspitze gekratzt; jeder Well einmal, Kratzlänge und -tiefe konsistent. Nach dem Kratzen wurden schwimmende Zellen entfernt, das Medium durch frisches ersetzt und der Kratzabstand nach 24 h Kultur unter dem Mikroskop beobachtet. Die Heilungsfläche der Kratzwunde wurde mit der National Instrument Vision Assistant 8.6 Software ermittelt. Zellmigration = Heilungsfläche der Kratzwunde / initiale Kratzwundenfläche × 100 %.
Versuchstiere und Etablierung von IA-Rattenmodellen
4undachtzig Sprague-Dawley (SD) Ratten, 7 Wochen alt, 180–200 g (Laboratory Animals Center, Academy of Military Medical Sciences, Peking, China) wurden ausgewählt. Die Ratten wurden im Tierversuchszentrum gehalten. Haltungsbedingungen: 22–25 °C, 50–60 % Luftfeuchtigkeit, natürliches Licht. Alle Ratten in Standardkäfigen mit 4 Ratten pro Käfig. Städtisches Trinkwasser und Standardfutter. Einstreu alle 3 Tage gewechselt, Käfig gewaschen und sterilisiert. IA-Ratten wurden gemäß Referenz [15] modelliert. Rupturiertes Aneurysma wurde identifiziert, wenn folgende Symptome bei Ratten auftraten [16]: 1, verringerte Fress- oder Trinkaktivität durch Gewichtsverlust (ca. 10 % in 24 h); 2, Flexion von Torso und Vorderbeinen beim Anheben; 3, Gehen auf einer Seite in normaler Haltung; 4, Neigung zu einer Seite in Ruhe, keine spontane Aktivität. Ratten mit diesen Symptomen wurden 3 Monate nach Operation euthanasiert. IA-Gewebe wurden während der Operation gewonnen und mit PBS perfundiert, blauer Farbstoff mit Glutaminsäure wurde in die Hirnarterie perfundiert.
Behandlung und Intervention der IA-Ratten
Die 84 Ratten wurden randomisiert in 7 Gruppen zu je 12 Ratten aufgeteilt. Behandlungsmethoden: Normalgruppe (keine Modellierung); IA-Gruppe (stereotaktische Injektion von 100 µL PBS + Lipofectamine 2000); Mimik-NC-Gruppe (100 µL miR-133a-3p-Mimik-NC + Lipofectamine 2000); miR-133a-3p-Mimik-Gruppe (100 µL miR-133a-3p-Mimik + Lipofectamine 2000); si-NC-Gruppe (100 µL si-PSAT1-NC + Lipofectamine 2000); si-PSAT1-Gruppe (100 µL si-PSAT1 + Lipofectamine 2000); miR-133a-3p-Mimik + oe-PSAT1-Gruppe (100 µL miR-133a-3p-Mimik + oe-PSAT1 + Lipofectamine 2000). Alle Injektionen wurden einmal täglich durchgeführt, Ratten wurden 12 Wochen in SPF-Tierlabor gehalten. Nach 12 Wochen wurden Ratten jeder Gruppe narkotisiert, Thorax eröffnet. Über linken Ventrikel in Aorta intubiert, Blut durch Durchtrennen der Hohlvene abgelassen. Gleichzeitig wurden 30 mL Heparin-NaCl (37 °C) durch den Katheter perfundiert, dann langsam 10 % Polyformaldehyd / 0,1 M Phosphatpuffer (pH 7,4) in das Gehirn injiziert. Nach Perfusionsfixierung wurde das Gehirn geöffnet. Der arterielle Ring an der Schädelbasis wurde unter Operationsmikroskop präpariert und entfernt, Aneurysmaveränderungen mikroskopisch beobachtet, pathologische Charakteristika erfasst. Mimik-NC, miR-133a-3p-Mimik, si-NC, si-PSAT1, oe-PSAT1 wurden von Shanghai Sangon Biotechnology Co., Ltd. (Shanghai, China) synthetisiert.
Hämodynamik-Detektion
Die Blutflussgeschwindigkeit am Ende der linken gemeinsamen Karotisarterie der Ratten wurde 3 Tage vor Operation und 12 Wochen nach Intervention getestet. Methode: Ratten in Narkosegerät fixiert, Flussparameter eingestellt. Nach stabiler Atmung und fehlender Reaktion auf Schwanzberührung wurden Ratten mit Gummiband auf Operationstisch fixiert. Halshaare elektrisch rasiert. Farb-Doppler-Ultraschalldetektor eingeschaltet, Blutflussgeschwindigkeit am Ende der linken gemeinsamen Karotis gemessen und Daten aufgezeichnet nach Auftragen von Koppelmittel. Nach Messung Ratten vorsichtig in Käfig zurück, Atemwege freigehalten bis Aufwachen.
RT-qPCR
Gesamt-RNA wurde mit RNAsimple Total RNA Extraction Kit (TIANGEN Biotech, Peking, China) extrahiert. Hochwertige RNA wurde durch UV-Analyse und Formaldehyd-Denaturierungs-Elektrophorese bestätigt, und RNA wurde mit PrimeScript RT Reagent Kit in cDNA revers transkribiert. PCR-Reaktion erfolgte mit SYBR Premix Ex TaqII (Takara, Dalian, Liaoning, China). PCR-Primer wurden von Beijing ComWin Biotech Co., Ltd. (Peking, China) entworfen und synthetisiert (Tabelle 1). U6 diente als interner Parameter für miR-133a-3p, PSAT1, GSK3β, β-Catenin, Bax, Bcl-2, Ki-67, Cyclin D1 mit GAPDH als internem Parameter. Daten wurden mit 2−ΔΔCt berechnet.
Western Blot Analyse
Gesamtproteine wurden aus Zellen und Geweben extrahiert, Proteinkonzentration mit BCA Protein Assay Kit (Beyotime Institute of Biotechnology, Shanghai, China) quantifiziert. Proben wurden mit 1/4 Volumen 5× Sample Buffer gemischt und 5 min gekocht. 10 % Trenn-Gel und 5 % Konzentrier-Gel für Elektrophorese. Membran 60 min in 5 % Magermilch blockiert. Membran mit Primärantikörpern inkubiert: PSAT1 (1:500), GSK3β (1:500), β-Catenin (1:5000), Bax (1:1000), Bcl-2 (1:1000), Cyclin D1 (1:200), Ki-67 (1:5000), MMP-9 (1 µg/mL), VEGF (1:1000) (alle Abcam, Cambridge, MA, USA). Dann 60 min mit Sekundärantikörper (1:2000) inkubiert. Membran 1 min in ECL-Lösung (Beyotime) getaucht, nach Entfernen der Flüssigkeit mit Frischhaltefolie abgedeckt. Membran auf Röntgenfilm belichtet, Ergebnis nach Entwicklung und Fixierung beobachtet. GAPDH (1:10000, Abcam) als Ladekontrolle, Proteinbild mit ImageJ2x Software analysiert.
Dual-Luciferase-Reportergen-Assay
Die Zielbeziehung zwischen miR-133a-3p und PSAT1 sowie die Bindungsstelle zwischen miR-133a-3p und PSAT1 3′UTR wurden durch Bioinformatik-Website (https://cm.jefferson.edu/rna22/Precomputed/) vorhergesagt. Die Sequenz des PSAT1 3′UTR-Promotorbereichs mit miR-133a-3p-Bindungsstelle wurde amplifiziert und in pGL3-basic Luciferase-Plasmid (Takara Bio Inc., Otsu, Shiga, Japan) kloniert, um Wildtyp (WT) Plasmid (PSAT1-WT) zu konstruieren, während mutantes (MUT) PSAT1-MUT Rekombinantenplasmid durch Punktmutation der miR-133a-3p-Bindungsstelle auf PSAT1-WT mit Punktmutationskit (Takara Bio Inc.) formuliert wurde. Vaskuläre ECs in logarithmischer Wachstumsphase wurden in 96-Well-Platten ausgesät. Bei Erreichen von ca. 70 % Konfluenz wurden PSAT1-WT und PSAT1-MUT Plasmide mit Mimik-NC und miR-133a-3p-Mimik Plasmiden durch Lipofectamine 2000 gemischt und ko-transfiziert in vaskuläre ECs. Zellen wurden 48 h nach Transfektion gesammelt und lysiert, Luciferase-Aktivität mit Luciferase-Detektionskit (Promega Corporation, Madison, WI, USA) verifiziert.
Statistische Analyse
Alle Daten wurden mit SPSS 21.0 (IBM Corp., Armonk, NY, USA) analysiert. Zähldaten als Rate oder Prozent angegeben, Analyse durch Chi-Quadrat-Test oder Fisher-Test. Messdaten normalverteilt als Mittelwert ± Standardabweichung. Vergleich zwischen zwei Gruppen durch t-Test, Vergleich mehrerer Gruppen durch Einfaktorielle Varianzanalyse (ANOVA) gefolgt von Tukeys Post-hoc-Test. P < 0,05 als signifikant angesehen.
Ergebnisse
Allgemeine Daten der IA-Patienten
Wie in Tabelle 2 dargestellt, wurden die allgemeinen Daten der IA-Gruppe und der Kontrollgruppe verglichen. Die spezifischen Informationen sind in Tabelle 2 aufgeführt.
Expression von miR-133a-3p korreliert mit Anzahl und Größe der IA
Durch Analyse der Beziehung zwischen miR-133a-3p-Expression und klinisch-pathologischen Merkmalen von IA zeigte sich (Tabelle 3), dass basierend auf der durchschnittlichen relativen Expression von miR-133a-3p in IA, 75 IA-Fälle in zwei Gruppen eingeteilt wurden: miR-133a-3p hohe Expression (n = 47) und niedrige Expression (n = 28). Der Zusammenhang zwischen miR-133a-3p und verschiedenen klinisch-pathologischen Parametern wurde statistisch per Chi-Quadrat-Test oder Fisher-Test analysiert. Die Ergebnisse zeigten, dass miR-133a-3p-Expression nicht mit Alter, Geschlecht, Form und Position des Aneurysmas korrelierte (alle P > 0,05), aber mit Anzahl und Größe des Aneurysmas assoziiert war (beide P < 0,05).
miR-133a-3p-Expression ist erniedrigt und PSAT1, GSK3β, β-Catenin-Expression erhöht in IA-Geweben
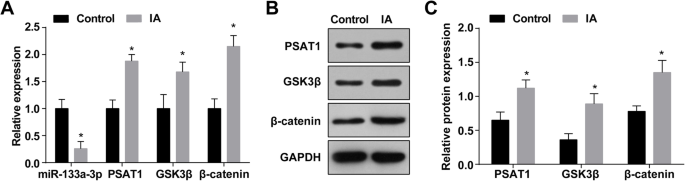
Die Expression von miR-133a-3p in IA wurde per RT-qPCR bestimmt; die Ergebnisse zeigten, dass im Vergleich zu normalen intrakraniellen Arteriolen-Geweben (Kontrollgruppe) die miR-133a-3p-Expression in IA-Geweben (IA-Gruppe) reduziert war (P < 0,05) (Abb. 1a). RT-qPCR und Western Blot zeigten, dass PSAT1, GSK3β und β-Catenin-Expression in IA-Geweben im Vergleich zu normalen intrakraniellen Arteriolen-Geweben erhöht war (alle P < 0,05) (Abb. 1a–c).
Pathologische Veränderungen des Aneurysmas und MMP-9/VEGF-Expression in IA-Geweben
Durch direkte Beobachtung normaler intrakranieller Arteriolen-Gewebe und IA-Gewebe zeigte sich: In der Kontrollgruppe waren die Gefäße in den arteriellen Geweben leuchtend rot, keine offensichtlichen atherosklerotischen Plaques und laterale Thromben im Lumen. Die Aneurysmagewebe der IA-Gruppe waren meist braun oder dunkelrot, skrotiform oder fusiform, zäh texturiert. Beim Aufschneiden zeigten einige Proben weiße oder dunkelrote atherosklerotische Plaques an der Tumorwand (flach, rund, oval). In einigen Proben lag Muralthrombus im Tumorkavern vor, weicher Textur. Die Tumordicke verjüngte sich vom Tumorhals zum Apex, manche hatten nur dünne Faserwand am Apex, einige waren sogar rupturiert. Die Rupturstelle lag am oder nahe dem Tumorapex.
HE-Färbung zeigte: In der Kontrollgruppe war die Wanddicke normaler intrakranieller Arteriolen gleichmäßig; anatomische Struktur von Intima, Media, Adventitia klar und intakt; Zellmorphologie jeder Schicht normal; Sarkolemmen benachbarter Zellen eng anliegend; entzündliche Zellen in der Wand selten. In der IA-Gruppe bildeten sich lokale Ausbuchtungen in der distalen lateralen Gefäßhöhle an der Bifurkationsspitze der intrakraniellen Arterie; Aneurysmawand wurde stumpf und kleiner, lokale ECs fehlten. Wenige Proben zeigten Migration von Glattmuskelzellen in die Intima und myogene Intimazellproliferation. ECs vermindert oder verschwunden. Endothelzellschicht bestand aus hyperplastischen Myointimazellen und linear angeordneten ECs oder apoptotischen ECs und an das Lumen angehafteten Blutzellen. Vakuoläre Degeneration und Kontinuitätsunterbrechung. Einige lösten sich mit Basalmembran ab, Intima-Kollagenfasern erhöht. Atherosklerose verändert, Arteriolenwand明显 verdünnt, gefüllt mit großen Mengen Bindegewebsleitern. Entzündungszellinfiltration und partielle Diffusion in allen Schichten, hauptsächlich Media und Adventitia. Lipid- und Cholesterinkristallablagerungen in einigen Zellen. Einige Tumorwände vollständig oder lokal verdünnt und nach außen expandiert (Abb. 2a, b).
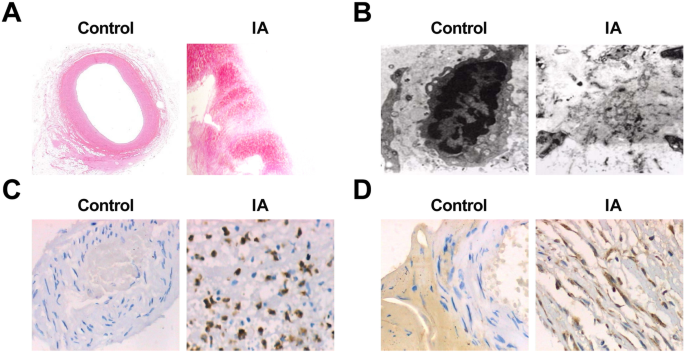
Schnitte normaler intrakranieller Arteriolen-Gewebe und IA-Gewebe wurden per Elektronenmikroskop beobachtet: In normalen Geweben waren Matrixfasern der zerebrovaskulären Wand klar sichtbar, keine Endothelverletzung, Zellpyknose oder Degeneration. In IA-Geweben waren offensichtliche Endothelzellverletzung, Zellpyknose, vakuoläre Degeneration beobachtet, Zahl der medialen Glattmuskelzellen verringert, 대부분 Kernpyknose, Chromatinaggregation und apoptotische Körper sichtbar. Einige Zellen zeigten Mitochondrienschwellung und Verschwinden normaler innerer Struktur. Extrazelluläre Matrix, die das Zytoskelett bildet, war verschwommen und zeigte amorphe Flocken. Viele Fragmente in fehlenden Zellteilen (Abb. 2c, d).
Immunhistochemische Färbung für MMP-9 und VEGF: In 75 Kontrollfällen keine Expression von MMP-9 und VEGF. In 75 IA-Proben 60 Fälle positiver MMP-9-Expression. MMP-9 positiv in Intima und Adventitia der IA-Wand, aber nicht uniform. Positiv hauptsächlich braun-gelbes Zytoplasma. VEGF positive Expression in 66 von 75 IA-Proben. In IA-Wand hohe positive Expression in Media und Adventitia, niedrige in Intima. Positiv ebenfalls braun-gelbes Zytoplasma (Abb. 2e, f). Expression von MMP-9 und VEGF in beiden Gruppen in Tabelle 4 dargestellt.
Identifikation vaskulärer ECs
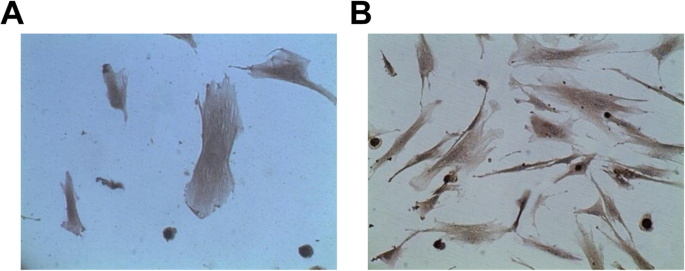
Expression von Faktor VIII und CD31 in ECs wurde per immunhistochemischer Färbung analysiert. Ergebnisse: Vaskuläre ECs reagierten positiv auf Faktor VIII- und CD31-assoziierte Antigen-Antikörper, Positivrate 95 %. Zudem große Anzahl brauner Partikel im Zytoplasma, fünfte Passage der braun gefärbten Zellen dramatisch höher als Primärpassage (Abb. 3a, b).
Hochregulation von miR-133a-3p und Downregulation von PSAT1 unterdrücken Apoptose und fördern Proliferation und Migration von ECs in IA
Durchflusszytometrie, RT-qPCR und Western Blot wurden zur Beobachtung der Apoptose und Bax/Bcl-2-Expression in IA-ECs nach Behandlung mit miR-133a-3p-Mimik oder si-PSAT1 eingesetzt. Im Vergleich zur Kontrollgruppe waren Apoptoserate und Bax-Expression in der IA-Gruppe erhöht, Bcl-2-Expression verringert (alle P < 0,05). IA-Gruppe, Mimik-NC-Gruppe und si-NC-Gruppe zeigten keine signifikanten Veränderungen in Zellapoptose und Bax/Bcl-2-Expression (alle P > 0,05). Im Vergleich zu si-NC-Gruppe und Mimik-NC-Gruppe wurde die Apoptoserate in si-PSAT1-Gruppe und miR-133a-3p-Mimik-Gruppe unterdrückt, Bax-Expression verringert, Bcl-2-Expression erhöht (alle P < 0,05). Im Vergleich zur miR-133a-3p-Mimik-Gruppe waren Apoptoserate und Bax-Expression in miR-133a-3p-Mimik + oe-PSAT1-Gruppe erhöht, Bcl-2-Expression verringert (alle P < 0,05) (Abb. 4a–e).
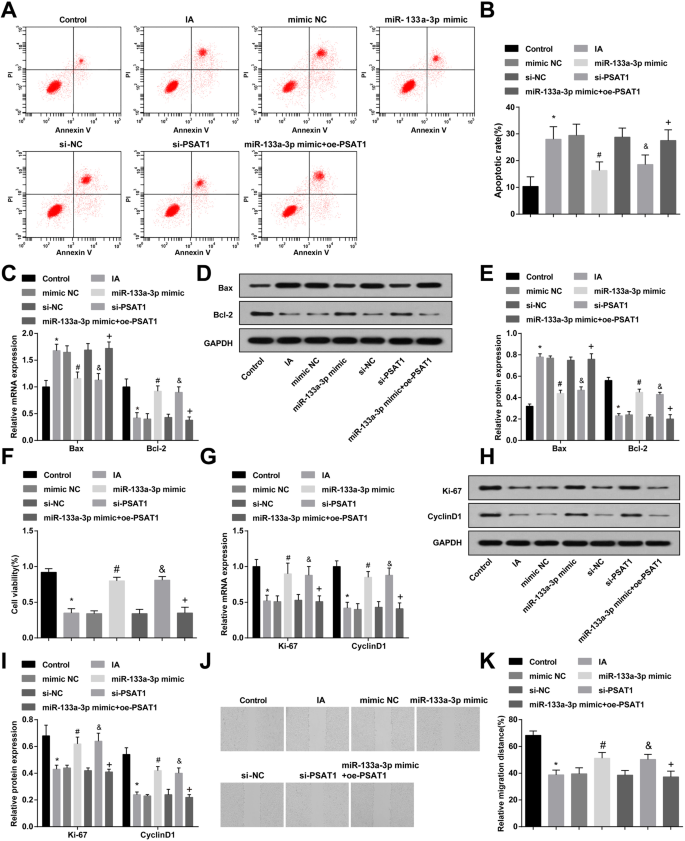
MTT-Assay, RT-qPCR und Western Blot zur Beobachtung der Proliferation und Ki-67/Cyclin D1-Expression in IA-ECs nach Behandlung mit miR-133a-3p-Mimik oder si-PSAT1. Im Gegensatz zur Kontrollgruppe waren Proliferationsaktivität und Ki-67/Cyclin D1-Expression in der IA-Gruppe reduziert (alle P < 0,05). Kein signifikanter Unterschied in Proliferationsaktivität und Ki-67/Cyclin D1-Expression zwischen IA-Gruppe, Mimik-NC-Gruppe und si-NC-Gruppe (alle P > 0,05). Im Vergleich zu si-NC-Gruppe und Mimik-NC-Gruppe waren Proliferationsaktivität und Ki-67/Cyclin D1-Expression in si-PSAT1-Gruppe und miR-133a-3p-Mimik-Gruppe erhöht (alle P < 0,05). Im Vergleich zur miR-133a-3p-Mimik-Gruppe waren Proliferationsaktivität und Ki-67/Cyclin D1-Expression in miR-133a-3p-Mimik + oe-PSAT1-Gruppe reduziert (alle P < 0,05) (Abb. 4f, i).
Migration der ECs in jeder Gruppe nach 24 h Behandlung mit miR-133a-3p-Mimik oder si-PSAT1 per Kratztest. Migration in IA-Gruppe war im Vergleich zur Kontrollgruppe inhibiert (P < 0,05). Keine markante Änderung in Zellmigration zwischen IA-Gruppe, si-NC-Gruppe und Mimik-NC-Gruppe (alle P > 0,05). Im Vergleich zu si-NC-Gruppe und Mimik-NC-Gruppe war Zellmigration in si-PSAT1-Gruppe und miR-133a-3p-Mimik-Gruppe erhöht (beide P < 0,05). Im Vergleich zur miR-133a-3p-Mimik-Gruppe war Zellmigration in miR-133a-3p-Mimik + oe-PSAT1-Gruppe verringert (P < 0,05) (Abb. 4j, k).
Wiederhergestelltes miR-133a-3p und depletiertes PSAT1 reduzieren PSAT1, GSK3β, β-Catenin-Expression in IA-ECs
RT-qPCR detektierte miR-133a-3p-Expression in IA-ECs: Im Vergleich zur Kontrollgruppe war miR-133a-3p in IA-Gruppe reduziert (P < 0,05). miR-133a-3p-Expression in IA-Gruppe, Mimik-NC-Gruppe, si-NC-Gruppe änderte sich nicht markant (P > 0,05). miR-133a-3p-Expression in miR-133a-3p-Mimik-Gruppe war erhöht im Vergleich zu Mimik-NC-Gruppe (P < 0,05). Im Gegensatz zu si-NC-Gruppe keine signifikante Änderung in si-PSAT1-Gruppe (P > 0,05). Im Vergleich zu miR-133a-3p-Mimik-Gruppe zeigte miR-133a-3p-Mimik + oe-PSAT1-Gruppe keine signifikante Differenz (P > 0,05) (Abb. 5a).
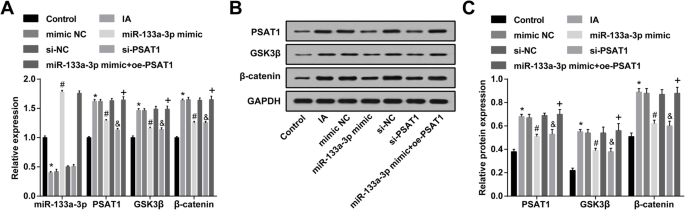
Expression von PSAT1, GSK3β, β-Catenin in IA-ECs per Western Blot und RT-qPCR. Im Vergleich zur Kontrollgruppe waren PSAT1, GSK3β, β-Catenin in IA-Gruppe erhöht (alle P < 0,05). In IA-Gruppe, Mimik-NC-Gruppe, si-NC-Gruppe keine dramatische Änderung (alle P > 0,05). In miR-133a-3p-Mimik-Gruppe und si-PSAT1-Gruppe waren PSAT1, GSK3β, β-Catenin reduziert im Vergleich zu Mimik-NC-Gruppe und si-NC-Gruppe (alle P < 0,05). Im Vergleich zu miR-133a-3p-Mimik-Gruppe waren PSAT1, GSK3β, β-Catenin in miR-133a-3p-Mimik + oe-PSAT1-Gruppe erhöht (alle P < 0,05) (Abb. 5a–c).
Hochreguliertes miR-133a-3p und downreguliertes PSAT1 lindern pathologische Veränderungen von IA-Geweben
Durch Testen hämodynamischer Veränderungen nach Modellierung wurde die Blutflussgeschwindigkeit der Ratten jeder Gruppe 3 Tage vor Operation und 12 Wochen nach Intervention überwacht. Kein offensichtlicher Unterschied in Blutflussgeschwindigkeit zwischen den Gruppen 3 Tage vor Operation (P > 0,05). Nach 12 Wochen Intervention war Blutflussgeschwindigkeit in IA-Gruppe im Vergleich zu Normalgruppe erniedrigt (P < 0,05). Kein signifikanter Unterschied im Grad der Verringerung zwischen IA-Gruppe, Mimik-NC-Gruppe, si-NC-Gruppe und miR-133a-3p-Mimik + oe-PSAT1-Gruppe (alle P > 0,05). Im Vergleich zu si-NC-Gruppe und Mimik-NC-Gruppe war Blutflussgeschwindigkeit in miR-133a-3p-Mimik-Gruppe und si-PSAT1-Gruppe erhöht (beide P < 0,05). Im Vergleich zu miR-133a-3p-Mimik-Gruppe war Blutflussgeschwindigkeit in miR-133a-3p-Mimik + oe-PSAT1-Gruppe verringert (P < 0,05) (Abb. 6a).
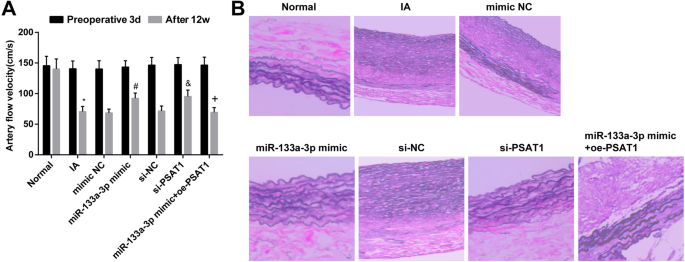
Veränderungen der IA-Gewebe wurden per HE-Färbung verifiziert. Ergebnisse: In Normalgruppe waren elastische Fasern in der Media der intrakraniellen Gefäßgewebe ordentlich, normale elastische Protein-Wellenstruktur vorhanden, keine Brüche und Degradation. Im Vergleich zur Normalgruppe war in IA-Gruppe das Lumen intrakranieller Gefäßgewebe erweitert, normale elastische Protein-Wellenstruktur verschwunden, elastische Fasern in der Media lokal gebrochen, einige elastische Fasern vollständig degradiert. Keine signifikante Veränderung in Morphologie der IA-Gewebe in si-NC-Gruppe, Mimik-NC-Gruppe, IA-Gruppe und miR-133a-3p-Mimik + oe-PSAT1-Gruppe. Im Gegensatz zu si-NC-Gruppe und Mimik-NC-Gruppe war in miR-133a-3p-Mimik-Gruppe und si-PSAT1-Gruppe die Wellenstruktur des elastischen Proteins in intrakraniellen Gefäßgeweben der Ratten vorhanden, lokale elastische Protein-Gefäßstruktur leicht ungeordnet, aber keine Fraktur und Auflösung (Abb. 6b).
Hoch exprimiertes miR-133a-3p und niedrig exprimiertes PSAT1 reduzieren PSAT1, GSK3β, β-Catenin, VEGF, MMP-9 in IA-Geweben in vivo
Expression von miR-133a-3p in IA-Geweben in vivo per RT-qPCR: Im Vergleich zur Normalgruppe war miR-133a-3p in IA-Gruppe erniedrigt (P < 0,05). In IA-Gruppe, Mimik-NC-Gruppe, si-NC-Gruppe keine offensichtliche Änderung (alle P > 0,05). miR-133a-3p in miR-133a-3p-Mimik-Gruppe erhöht vs. Mimik-NC-Gruppe (P < 0,05). Im Vergleich zu si-NC-Gruppe keine markante Änderung in si-PSAT1-Gruppe (P > 0,05). Im Vergleich zu miR-133a-3p-Mimik-Gruppe zeigte miR-133a-3p-Mimik + oe-PSAT1-Gruppe keine signifikante Differenz (P > 0,05) (Abb. 7a).
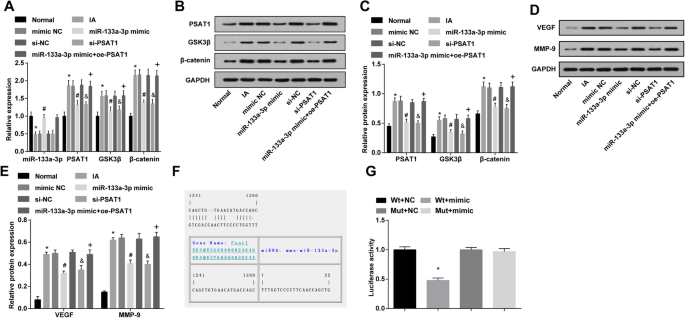
Expression von PSAT1, GSK3β, β-Catenin in IA-Geweben in vivo per Western Blot und RT-qPCR. Im Gegensatz zur Normalgruppe waren PSAT1, GSK3β, β-Catenin in IA-Gruppe erhöht (alle P < 0,05). In IA-Gruppe, Mimik-NC-Gruppe, si-NC-Gruppe keine markante Änderung (alle P > 0,05). In miR-133a-3p-Mimik-Gruppe und si-PSAT1-Gruppe waren PSAT1, GSK3β, β-Catenin verringert vs. Mimik-NC-Gruppe und si-NC-Gruppe (alle P < 0,05). Im Vergleich zu miR-133a-3p-Mimik-Gruppe waren PSAT1, GSK3β, β-Catenin in miR-133a-3p-Mimik + oe-PSAT1-Gruppe erhöht (alle P < 0,05) (Abb. 7a–c).
Western Blot zur Verifizierung von VEGF und MMP-9 in IA-Geweben in vivo: Im Vergleich zur Normalgruppe waren VEGF und MMP-9 in IA-Gruppe erhöht (beide P < 0,05). In IA-Gruppe, Mimik-NC-Gruppe, si-NC-Gruppe keine offensichtliche Änderung (alle P > 0,05). Im Vergleich zu Mimik-NC-Gruppe und si-NC-Gruppe waren VEGF und MMP-9 in miR-133a-3p-Mimik-Gruppe und si-PSAT1-Gruppe verringert (alle P < 0,05). Im Vergleich zu miR-133a-3p-Mimik-Gruppe waren VEGF und MMP-9 in miR-133a-3p-Mimik + oe-PSAT1-Gruppe erhöht (alle P < 0,05) (Abb. 7d, e).
PSAT1 ist ein Target-Gen von miR-133a-3p
Online-Vorhersagesoftware (https://cm.jefferson.edu/rna22/Precomputed/) wurde genutzt, um die Target-Sequenz von PSAT1 Bindung an miR-133a-3p und die 3′UTR-Sequenz der PSAT1/miR-133a-3p-Bindung vorherzusagen. Um zu beweisen, dass die vorhergesagte Bindungsstelle von miR-133a-3p eine Änderung der Luciferase-Aktivität bewirkt, wurden Mutationssequenz und Wildtyp-Sequenz von PSAT1 3′UTR ohne miR-133a-3p-Bindungsstelle entworfen. Luciferase-Aktivität wurde durch Ko-Transfektion von miR-133a-3p-Mimik und WT (Wt-miR-133a-3p/PSAT1) oder MUT (Mut-miR-133a-3p/PSAT1) Rekombinantenplasmiden in vaskulären ECs verifiziert. Ergebnisse: miR-133a-3p-Mimik hatte keinen signifikanten Effekt auf Luciferase-Aktivität in Mut-miR-133a-3p/PSAT1-Gruppe (P > 0,05), während Luciferase-Aktivität in Wt-miR-133a-3p/PSAT1-Gruppe signifikant erniedrigt war (P < 0,05) (Abb. 7f, g).
Diskussion
IA ist eine abnorme Dilatation der intrakraniellen Arterie, die die Arterienwand durch kontinuierliches Ausdrücken nach außen schwächt und das Rupturrisiko erhöht [17]. In einer Studie von Liu et al. wurde gezeigt, dass einige miRNAs die Zellproliferation vaskulärer Glattmuskelzellen modulieren, was eng mit IA assoziiert ist [18]. Eine jüngste Studie lieferte den Beweis, dass zirkulierende miRNAs als neue Biomarker zur Bewertung der IA-Wahrscheinlichkeit bei Hochrisiko-Individuen dienen können [19]. Es wird gewöhnlich angenommen, dass PSAT1 an Schizophrenie-Spektrum-Erkrankungen beteiligt sein und den Serinstoffwechsel verändern könnte [20]. Die vorliegende Studie wurde konzipiert, um die regulatorische Rolle von miR-133a-3p-modulierter vaskulärer Endothelverletzung und ausgelöster IA durch Modulation des PSAT1/GSK3β/β-Catenin-Signalwegs zu erforschen.
In dieser Studie wurde die Beziehung zwischen miR-133a-3p-Expression und klinisch-pathologischen Merkmalen von IA analysiert; die Ergebnisse zeigten, dass miR-133a-3p-Expression nicht mit Alter, Geschlecht, Form und Position des Aneurysmas korrelierte, aber mit Anzahl und Größe assoziiert war. Einige Wissenschaftler betrachteten, dass der Scherstress des regionalen Blutflusses in der Arterienwand die Induktion von Monozyten-Chemotaktischem Protein-1 (MCP-1) und Makrophagen-Entzündungsprotein 1α (MIP-1α) durch Fibroblasten und vaskuläre ECs in der Gefäßwand bewirkt. Die hochreaktiven Chemotaktischen Faktoren MCP-1 und MIP-1α bewirkten eine Aggregation von Makrophagen in der Gefäßwand und vermittelten Entzündungsreaktion, induzierten die Erregung des nukleären Transkriptionsfaktors c-Jun und regulierten die Aktivierung von aktiviertem Protein 1 (AP-1), aktivierten dann den MMP-9-Promotor in seiner strukturellen Domäne zur Erhöhung der MMP-9-mRNA-Expression und induzierten schließlich die Auflösung der extrazellulären Matrix der Gefäßwand, was zur Bildung intrakranieller Aneurysmen führt [21–23]. Saito et al. [24] fanden, dass MMP-9-positive Zellen hauptsächlich aus Media und Adventitia der Arterienmakrophagen stammten, was bestätigte, dass von Makrophagen exprimiertes MMP-9 die Degeneration der Arterienwand vermittelt und zur Bildung arterieller Aneurysmen führt. Die obigen Studien wiesen darauf hin, dass MMP-9 mit der Bildung von IA verknüpft ist. Unsere Ergebnisse zeigten, dass MMP-9 in IA hochreguliert war; somit spekulierten wir, dass miR-133a-3p an Entstehung und Entwicklung von IA durch Regulation des PSAT1/GSK3β/β-Catenin-Signalwegs und weitere Regulation von MMP-9 beteiligt sein könnte. In unserer Studie fanden wir, dass die Wiederherstellung von miR-133a-3p die Expression von PSAT1, GSK3β, β-Catenin und MMP-9 in intrakraniellen Aneurysmageweben reduzierte. Wir werden in zukünftigen Studien relevante Forschung durchführen, um unsere Ergebnisse zu verifizieren.
Unsere Studie liefert substanzielle Belege dafür, dass miR-133a-3p-Expression erniedrigt und PSAT1, GSK3β, β-Catenin in IA erhöht waren. Neue Evidenzen deuten darauf hin, dass miR-133a-3p eine suppressivere Rolle in verschiedenen Tumorarten spielt. Eine jüngste Studie zeigte, dass miR-133a-3p-Expression in Brustkrebsgeweben im Vergleich zu Nicht-Krebsgeweben dramatisch erniedrigt war [25]. Eine andere Studie behauptete, dass miR-133a-3p-Expression in fortgeschrittenem Prostatakarzinom (PCa) im Vergleich zu adjacentem Normalgewebe oder benigner Prostata-Läsion, besonders in Knochenmetastasen-PCa, erniedrigt war [26]. Der promotive Effekt von PSAT1 in anderen Erkrankungen findet sich in einigen Publikationen. Es wurde berichtet, dass PSAT1-Expression in nicht-kleinzelligem Lungenkrebs (NSCLC) bemerkenswert erhöht war und ein schlechtes klinisches Outcome von NSCLC-Patienten vorhersagte [27]. Ferner gilt PSAT1 als am höchsten hochreguliertes Gen in CRC-Tumoren und hoch exprimiert bei chemoresistenten Patienten [28]. Es wurde manifestiert, dass GSK3β-Aktivität in krebsartigen Geweben erhöht war [29]. Zudem waren Phosphorylierungslevel von GSK3β und Expression von nukleärem β-Catenin ebenfalls erhöht, was suggeriert, dass GSK3β/β-Catenin-Signalweg an Osteopontin-Regulation beteiligt sein könnte [30].
Weitere Ergebnisse unserer Daten legten nahe, dass Hochregulation von miR-133a-3p und Downregulation von PSAT1 Apoptose unterdrückten und Proliferation und Migration von IA-ECs förderten, VEGF und MMP-9 in IA-Geweben reduzierten. Es wurde zuvor vorgeschlagen, dass die Überexpression von miR-133a-3p Invasion, Wachstum und Mitose von oralen Plattenepithelkarzinomzellen durch Targeting von Kollagen Typ I Alpha 1 (COL1A1) zurückhält [31]. Es wird berichtet, dass hoch exprimiertes miR-133a-3p die Propagation von ESCC-Zellen repressieren, Zellapoptose fördern und Migration und Invasion von ESCC-Zellen durch Targeting von COL1A1 verringern kann [32]. Eine andere Studie verifizierte, dass transiente Hochregulation von miR-133a-3p Migration, Invasion und Wachstum von Gallenblasenkarzinomzellen durch direktes Targeting von Rekombinationssignal-bindendem Protein Jκ unterdrückt [33]. In ähnlicher Weise deutet diese Studie an, dass miR-133a-3p seine Rolle in IA durch Targeting von PSAT1 ausübt. Es wurde gezeigt, dass PSAT1-Überexpression ESCC-Zellwachstum und Matrigel-Invasion in vitro fördert, und Injektion von Mäusen mit hoch PSAT1-exprimierenden ESCC-Zellen Tumorformation in vivo induziert [14]. Andere Studien berichteten ebenfalls, dass PSAT1 hoch exprimiert ist und ein schlechtes klinisches Outcome vorhersagt, sowie Zelltumorigenese und Proliferation in vivo und in vitro verstärkt [13]. Frühere Forschung bestätigt generell, dass PSAT1 Zellzyklusfortschritt, Proliferation und Tumorigenese durch Loss- und Gain-of-Function-Experimente fördert [27]. Es wurde angezeigt, dass MMPs aus einer Reihe von Enzymen bestehen, die Proteinsubstrate basierend auf einem konservierten Mechanismus durch Aktivierung eines wassergebundenen Zn2+-Ions am aktiven Zentrum spalten [34]. MMP-9 ist eine distinkte Protease, die enormen Einfluss auf viele biologische Prozesse hat [35]. Eine Studie behauptete, dass MMP-9 in Aneurysma-Gruppen im Vergleich zur Kontrollgruppe erhöht war [36]. Vaskulärer Endothelwachstumsfaktor-A (VEGF-A) wird als Schlüsselmotor der endovaskulären Differenzierung von Trophoblasten erkannt [37]. Eine Studie enthüllte, dass silencierte PSAT1-Expression VEGF, β-Catenin und GSK3β-Phosphorylierungsexpression unterdrückt [10].
Fazit
Zusammenfassend bestätigt unsere Studie die Hypothese, dass die Überexpression von miR-133a-3p oder die Downregulation von PSAT1 Endothelzellschäden hemmt und die Endothelzellproliferation durch Inhibition des GSK3β/β-Catenin-Signalwegs in IA fördert. Diese Erkenntnisse liefern neue Einblicke in eine neuartige zielgerichtete Therapie für IA. Diese Ergebnisse unterstreichen die Rolle von miR-133a-3p in IA im Zusammenhang mit dem PSAT1/GSK3β/β-Catenin-Signalweg. Aufgrund begrenzter bekannter Forschungen hierzu kann jedoch kein klares Fazit zu den Effekten von miR-133a-3p und PSAT1 gezogen werden. Dies muss in zukünftigen klinischen Studien rigoros überwacht und angemessen berichtet werden.
Verfügbarkeit der Daten und Materialien
Nicht zutreffend
Abkürzungen
- miR-133a-3p:
- MicroRNA-133a-3p
- IA:
- Intrakranielles Aneurysma
- PSAT1:
- Phosphoserin-Aminotransferase 1
- GSK3:
- β-Glykogensynthase-Kinase 3β
- SAH:
- Subarachnoidale Blutung
- MiRNAs:
- MicroRNAs
- CRC:
- Kolorektaler Krebs
- ESCC:
- Ösophageales Plattenepithelkarzinom
- HE:
- Hämatoxylin-Eosin
- PBS:
- Phosphatpuffer Kochsalzlösung
- MMP:
- Matrix-Metalloprotease
- VEGF:
- Vaskulärer Endothelwachstumsfaktor
- NC:
- Negative Kontrolle
- DAB:
- Diaminobenzidin
- FBS:
- Fötales Kälberserum
- UEAI:
- Ulex europaeus Agglutinine I
- PI:
- Propidiumiodid
- FITC:
- Fluorescein-Isothiocyanat
- DMSO:
- Dimethylsulfoxid
- OD:
- Optische Dichte
- SD:
- Sprague-Dawley
- SPF:
- Spezifisch pathogenfrei
- GAPDH:
- Glyceraldehyd-3-phosphat-Dehydrogenase
- BCA:
- Bicinchonsäure
- 3′UTR:
- 3′ Untranslatierte Region
- WT:
- Wildtyp
- MUT:
- Mutant
- ANOVA:
- Varianzanalyse
- NSCLC:
- Nicht-kleinzelliger Lungenkrebs
- VEGF-A:
- Vaskulärer Endothelwachstumsfaktor-A
Nanomaterialien
- Gemeinsamer-Emitter-Verstärker verstehen: Schalten, Verstärken und Vorspannungstechniken
- Icariin-beladene mPEG-Nanopartikel: Verbesserter Schutz vor LPS-induzierter Kardiotoxizität in H9c2-Zellen
- Nanopartikel-verabreichtes Artesunat steigert antitumorale Wirksamkeit durch Aktivierung mitochondrialer Apoptose
- Schnelles Thermisches Glühen ermöglicht gleichmäßiges In₂Se₃ Nanodrahtwachstum bei niedrigen Temperaturen
- Leicht synthetisiertes wurmlochartiges mesoporöses SnO₂ durch verdampfungsinduzierte Selbstorganisation: Überlegene Ethanol-Gassensor-Leistung
- Anpassung der Graphen-Arbeitsfunktion über Größe, Funktionalisierung, Defekte und Dotierung: Eine First-Principles-Untersuchung
- Kristalline Si-Solarzellen mit Black-Silicon-Rückschicht: Effizienzsteigerung durch graduierte Bandlücken-Technik
- Regelung der Gleit-Roll-Bewegung von Kohlenstoffnanoröhren durch Hydroxyl-Funktionalisierung
- Optimierung der breitbandigen Lichtabsorption in Dünnschicht-Silizium-Solarzellen mit beidseitigen Pyramiden-Gittern
- Lithocholsäure-funktionalisierte Goldnanopartikel induzieren selektive Apoptose in Leberkrebszellen