



F-Aktin vermittelt osteogene Differenzierung mesenchymaler Stammzellen auf TiO₂-Nanoröhren über MKL1 und YAP/TAZ
Zusammenfassung
Titan und Titanlegierungen werden aufgrund ihrer hervorragenden Biokompatibilität, Korrosionsbeständigkeit und mechanischen Eigenschaften breit in orthopädischen Implantaten verwendet. Die Modifikation der Nanotopographie bietet eine neue Strategie zur Verbesserung der Osseointegration von Titansubstraten. Die Polymerisation von filamentösem Aktin (F-Aktin), als mechanische Belastungsstruktur, wird allgemein als beteiligt an Zellmigration, Endozytose, Zellteilung und Erhaltung der Zellform betrachtet. Ob F-Aktin beteiligt ist und wie es in der nanoröhreninduzierten osteogenen Differenzierung mesenchymaler Stammzellen (MSCs) funktioniert, bleibt zu klären. In dieser Studie fertigten wir TiO₂-Nanoröhren auf der Oberfläche eines Titansubstrats durch anodische Oxidation an und charakterisierten ihre Merkmale mittels Rasterelektronenmikroskopie (SEM), Röntgenenergiedispersiver Analyse (EDS) und Rasterkraftmikroskopie (AFM). Alkalische Phosphatase (ALP)-Färbung, Western Blot, qRT-PCR und Immunfluoreszenzfärbung wurden durchgeführt, um das osteogene Potenzial, den F-Aktin-Spiegel und die Expression von MKL1 und YAP/TAZ zu erforschen. Unsere Ergebnisse zeigten, dass der Innendurchmesser und die Rauheit der TiO₂-Nanoröhren mit steigender anodischer Oxidationsspannung von 30 auf 70 V zunahmen, während ihre Höhe konstant 2 μm blieb. Weiterhin war die Fähigkeit der TiO₂-Nanoröhren, die osteogene Differenzierung von MSCs zu fördern, umso stärker, je größer der Röhrendurchmesser war. Die Inhibition der F-Aktin-Polymerisation durch Cyto D hemmte die osteogene Differenzierung von MSCs sowie die Expression von Proteinen in fokalen Adhäsionskomplexen wie Vinculin (VCL) und Fokaler Adhäsionskinase (FAK). Im Gegensatz dazu verstärkte nach Jasp-Behandlung die Polymerisation von F-Aktin die Expression von RhoA und Transkriptionsfaktoren YAP/TAZ. Basierend auf diesen Daten schlossen wir, dass TiO₂-Nanoröhren die osteogene Differenzierung von MSCs förderten, und diese Fähigkeit wurde mit zunehmendem Durchmesser der Nanoröhren innerhalb eines bestimmten Bereichs (30–70 V) verstärkt. F-Aktin vermittelte diesen Prozess über MKL1 und YAP/TAZ.
Einleitung
Titan und Titanlegierungen werden aufgrund ihrer ausgezeichneten Biokompatibilität, Korrosionsbeständigkeit und mechanischen Eigenschaften breit in klinischen Anwendungen wie Totalgelenkersatz und Dentalimplantaten eingesetzt [1–3]. Es bleiben jedoch viele Herausforderungen ungelöst, einschließlich aseptischer Lockerung und Infektion [4, 5]. In den letzten Jahren wurden zahlreiche Studien zur Verbesserung der Osseointegration und antibakteriellen Eigenschaften durchgeführt. Beispielsweise kann die MoS₂/PDA-RGD-Beschichtung auf Titanimplantaten nicht nur die Integration eines Titanimplantats mit dem Wirtsknochen fördern, sondern auch das Bakterienwachstum mit hoher Effizienz hemmen [6]. Zusätzlich hat die Oberflächentopographie zunehmend Aufmerksamkeit erregt, und topographische Modifikation unterscheidet sich von chemischen Modifikationen dadurch, dass sie nur die Mikro- und Nanostruktur verändert. Die Stimulation chemischer Signale auf Zellen ist instabil und zytotoxisch. Im Vergleich dazu können sichere und kontrollierbare physikalische Signale einige durch chemische Moleküle verursachte Nebenwirkungen vermeiden. Daher kann die topographische Modifikation der Implantatoberfläche und die Regulation der Osseointegration durch topographische Struktur einen neuen Weg bieten, das klinische Problem schlechter Osseointegration nach Prothesenimplantation zu lösen.
Im Bereich der Knochengewebetechnik und Knochenregeneration wird die Zell-Morphologie-Wechselwirkung als vielversprechende Managementstrategie für die präzise Kontrolle von Saatzellfunktion und -differenzierung betrachtet. Gleichzeitig besitzt der Knochen selbst eine elegante Hierarchie im Nanometer- und Mikrometerbereich [7]. Daher kann die Oberflächenmorphologie eine ähnliche Nische bieten, die die natürliche Knochenstruktur nachahmen und die osteogene Differenzierung mesenchymaler Stammzellen auf der Oberfläche des Wirtsknochens und Implantats fördern kann. Oberflächenmorphologien können aus vielen verschiedenen Strukturen bestehen, einschließlich Nanoröhren, Nanodrähten, Nanoporen usw. Insbesondere haben Nanoröhrenarrays in den letzten Jahren aufgrund ihrer einzigartigen Oberflächeneigenschaften wie hohem Oberflächen-Volumen-Verhältnis, biologischer Plastizität und hoher Adsorptionskapazität breites Interesse in vielen Bereichen geweckt. Beispielsweise zeigt eine neue Studie, dass Bornitrid-Nanoröhren (BNNT) ein gasempfindliches Material darstellen, das als Gassensor zur Überwachung des Transformatorbetriebs durch Detektion der Zusammensetzung und des Gehalts gelöster Gase im Öl verwendet werden kann [8]. In der Biomedizin kann die Oberflächentopographie auch zelluläres Verhalten steuern, einschließlich Zellmigration, Adhäsion, Proliferation und Differenzierung. Neueste Studien zeigen, dass Nanotopographie mesenchymale Stammzellen (MSCs) in Osteoblasten differenzieren kann, um die frühe Osseointegration zu verstärken [9–12]. Es wird sogar berichtet, dass kombinierte Mikro- und Nano-Oberflächenmodifikation MSCs in kontraktile glatte Muskelzellen differenzieren lassen kann [13]. Die molekularen Mechanismen, wie Oberflächentopographie das Zellschicksal steuert, sind jedoch noch nicht aufgeklärt, was für Material-Sicherheitsbewertung und Materialdesign wichtig ist.
Filamentöses (F-) Aktin, auch Mikrofilament genannt, ist einer der drei Hauptbestandteile des Zytoskeletts in eukaryotischen Zellen. Es besteht aus Polymeren von globulärem (G-) Aktin, modifiziert durch zahlreiche andere Proteine. F-Aktin hat strukturelle Polarität, da alle Untereinheiten des Mikrofilaments zum gleichen Ende zeigen. Das stachelige Ende richtet sich auf ein anderes benachbartes Monomer, während das spitze Ende eine Aktin-Untereinheit mit der exponierten ATP-Bindestelle besitzt. Das heißt, ATP ist am Transformationsprozess zwischen G-Aktin und F-Aktin beteiligt. Dieser Prozess befindet sich in einem dynamischen Gleichgewicht, bei dem Polymerisation und Depolymerisation simultan ablaufen, auch als Treadmilling bekannt, oft in Lamellipodien und Filopodien zu sehen [14]. Daher ist offensichtlich, dass Aktin-Dynamik eine wichtige Rolle in zellulären Funktionen wie Zellmigration, Zellteilung und Erhaltung der Zellform spielt. F-Aktin fungiert jedoch nicht nur als physikalische Struktur zur Unterstützung mechanischer Belastung, sondern nimmt auch an anderen biologischen Verhaltensweisen wie Signaltransduktion und Genexpression teil. Zunehmende Beweise zeigen, dass F-Aktin physikalische Signale in chemische Signale umwandeln kann, indem es mit anderen Proteinen interagiert [15–18]. Beispielsweise fördern biomechanische und geometrische Rekonstruktion Tumorzellapoptose, indem sie die Superposition der Aktin-Monomer-Polymerisation zu F-Aktin verhindern [15]. Ultraschallimpulse verbessern die Osteogenese humaner mesenchymaler Stammzellen durch Hemmung der Depolymerisation von F-Aktin [16]. Unsere frühere Studie zeigte auch, dass mechanische Dehnung die Stabilität von F-Aktin erhöht [17]. Da die hohle Struktur von Nanoröhren weniger Adhäsionsstellen für Zellen bietet, ist eine Umordnung des Zytoskeletts unvermeidlich, um das biomechanische Gleichgewicht zu erhalten. Folglich haben wir definitiv Grund zu der Annahme, dass F-Aktin wahrscheinlich die nanoröhreninduzierte Zelldifferenzierung vermittelt.
In dieser Studie fertigten wir TiO₂-Nanoröhren an, modifizierten ihre Topographie durch anodische Oxidation und erforschten ihre Fähigkeit, die osteogene Differenzierung von MSCs zu fördern. Als Nächstes untersuchten wir, ob F-Aktin eine kritische Rolle in der Mechanotransduktion spielt. Cytochalasin D (Cyto D), das kompetitiv an das stachelige Ende von F-Aktin bindet, um die Einlagerung von G-Aktin in das Filament zu verhindern, wurde verwendet, um die F-Aktin-Polymerisation zu inhibieren, und Jasplakinolid (Jasp) wurde verwendet, um die Stabilisierung der Aktin-Assemblierung zu erhöhen. Weiterhin wollten wir auch klären, wie F-Aktin physikalische Signale in biochemische Signale umwandelt. Basierend auf den Ergebnissen unserer früheren Studie vermuteten wir, dass der MAPK-Signalweg in diesen Prozess involviert sein könnte [17]. Transkriptionsfaktoren wie Yes-assoziiertes Protein (YAP)/Transkriptionskoaktivator mit PDZ-Bindemotiv (TAZ) und MKL1, die als Mechanosensoren und Mechanotransduktoren betrachtet werden, waren auch Gegenstand unserer Studie, um zu untersuchen, wie F-Aktin das Stammzellschicksal beeinflusst, da einige Studien in anderen Bereichen implizierten, dass sie mit F-Aktin in Verbindung stehen [19–21]. Insgesamt hoffen wir, die Rolle von F-Aktin im Prozess der Stammzelldifferenzierung, induziert durch Nanoröhren, zu klären, um das Materialdesign und die Biosicherheitsbewertung von durch Nanoröhren modifizierten Implantaten zu leiten.
Materialien und Methoden
Herstellung von TiO₂-Nanoröhren
Reine Titanscheiben (99,9% Reinheit, 2 mm Dicke; Shengshida, Hebei, China), als Substrat verwendet, wurden mit Siliziumkarbid-Schleifpapier der Körnungen 400 und 1500 poliert. Die Proben wurden dann sequentiell mit Aceton, absolutem Alkohol und deionisiertem Wasser in einer Ultraschallreinigungsmaschine gewaschen und schließlich 3 h bei Raumtemperatur getrocknet. Zur Herstellung der Nanotopographie wurden die vorbehandelten Proben als Anode fixiert, während ein Platinstück als Gegenkathode in einer wässrigen Elektrolytlösung von 0,15 M NH₄F und 90% Glykol für 1 h diente. Die Anodisierungsspannung war eine konstante Spannung von 30, 40, 50, 60 oder 70 V. Nach anodischer Oxidation wurde jede Probe 30 min mit deionisiertem Wasser gespült und 15 min in absolutem Alkohol in einer Ultraschallreinigungsmaschine gewaschen. Schließlich wurden alle Proben 1 h bei 120 °C im Autoklaven sterilisiert und vor Gebrauch mit Kulturmmedium benetzt.
Der Reaktionsmechanismus der Nanoröhrenherstellung ist nicht geklärt, und die aktuelle Mainstream-Theorie ist die feldverstärkte Auflösungstheorie. Die Bildung von Nanoröhrenarrays ist das Ergebnis eines dynamischen Gleichgewichts unter der Wirkung von Feldoxidation, Feldauflösung und chemischer Auflösung (Abb. 1b). Der Anodisierungsprozess kann wie folgt beschrieben werden: Im ersten Schritt wird eine Oxid-Sperrschicht an der Elektrolyt-Metall-Grenzfläche gebildet:
$$ {\mathrm{Ti}}^{4+}+2{\mathrm{H}}_2\mathrm{O}\to {\mathrm{Ti}\mathrm{O}}_2+4{\mathrm{H}}^{+} \tag{1} $$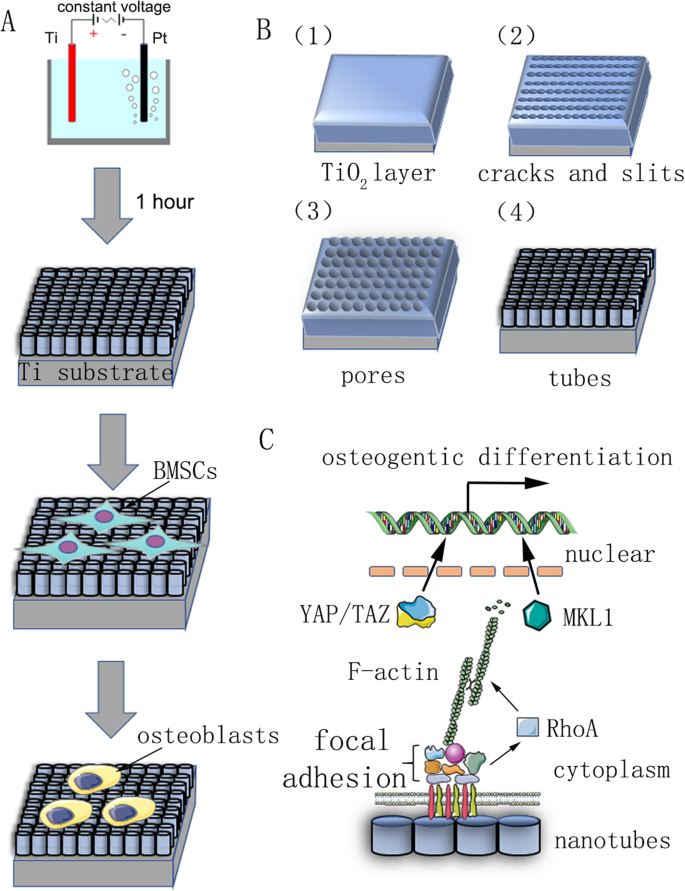
Dann erscheinen Risse und schmale Schlitze auf der Oberfläche aufgrund der feldverstärkten Auflösung der Oxidschicht. Diffusion von F⁻-Ionen in diese Risse und Schlitze erhöht die Auflösungsrate. Risse vergrößern sich und verbinden sich mit benachbarten Rissen. Schließlich erreichen die Bildungsrate und Auflösungsrate der Titanoxidschicht ein dynamisches Gleichgewicht, und die Nanoröhren wachsen nicht mehr:
$$ {\mathrm{TiO}}_2+6{\mathrm{F}}^{-}+4{\mathrm{H}}^{+}\to {\left[{\mathrm{TiF}}_6\right]}^{2-}+2{\mathrm{H}}_2\mathrm{O} \tag{2} $$Oberflächencharakterisierung
Proben, hergestellt mit verschiedenen Spannungen (30, 40, 50, 60 oder 70 V), wurden 15 min mit Ethanol und deionisiertem Wasser gespült, dann bei Raumtemperatur getrocknet. Rasterelektronenmikroskopie (SEM450, FEI Nova Nano SEM; Thermo Fisher Scientific, Waltham, MA, USA) wurde verwendet, um die Oberflächenstruktur zu charakterisieren und den Innendurchmesser und die Höhe der Nanoröhren nach Beschichtung der Proben mit einer dünnen Goldschicht zu messen. Gleichzeitig wurde Röntgenenergiedispersive Analyse (EDS) durchgeführt, um die elementare Zusammensetzung der Nanoröhren zu analysieren. Rasterkraftmikroskopie (AFM, NanoManVS, Bruker Nano Surfaces, Bruker MicroCT, Kontich, Belgien) wurde verwendet, um die Oberflächenmorphologie und Oberflächenrauheit der Proben zu untersuchen. Drei verschiedene Bereiche wurden von jeder Probe ausgewählt und die Messungen dreimal wiederholt.
Zellkultur
Vier Wochen alte männliche Sprague-Dawley (SD) Ratten wurden vom Versuchstierzentrum des Shanghai Ninth People's Hospital (Shanghai, China) bezogen. Ratten-Knochenmark-Mesenchymale Stammzellen (BMSCs) wurden aseptisch aus Femora und Tibien isoliert. BMSCs wurden gereinigt und weiter in α-minimalem essentiellen Medium (α-MEM; Hyclone, Logan, UT, USA) mit 10% (v/v) fötalem Kälberserum (FBS) (Gibco/Life Technologies, Carlsbad, CA, USA), 100 mg/ml Streptomycin (Gibco) und 100 U/ml Penicillin (Gibco) expandiert und bei 37 °C in einer befeuchteten Atmosphäre aus 95% Luft und 5% CO₂ inkubiert. Das Kulturmmedium wurde alle 2 Tage erneuert, und Zellen wurden bei 80% Konfluenz trypsiniert und subkultiviert. Alle in dieser Studie verwendeten Zellen lagen zwischen Passage 3 und 5. Osteogenes Induktionsmedium bestand aus Wachstumsmedium ergänzt mit 100 nM Dexamethason, 10 mM β-Glycerophosphat und 50 mM Ascorbinsäure (Sigma–Aldrich, St Louis, MO, USA).
Zellproliferationsassay
Die TiO₂-Nanoröhren-modifizierten Titanscheiben wurden in kreisförmige Formen geschnitten und in Vertiefungen einer 24-Well-Zellkulturplatte gelegt. BMSCs zwischen Passage 3–5 wurden auf TiO₂-Nanoröhren mit einer Dichte von 3×10⁴ Zellen/Scheibe in entweder Wachstumsmedium oder osteogenem Medium kultiviert. Nach 2 Tagen Zellkultur wurden Cytochalasin D (Cyto D, Sigma–Aldrich) und Jasplakinolid (Jasp, Sigma–Aldrich), verwendet zur Disruption der F-Aktin-Polymerisation, täglich für 3 Tage dem Medium zugesetzt. Die finale Konzentration und Einwirkzeit von Cyto D und Jasp betrugen 5 μM, 1 h bzw. 2 μM, 3 h. Das Kulturmedium wurde nach Inkubation mit den Reagenzien erneuert. Zelllebensfähigkeit und -proliferation wurden 12 h nach Cyto D oder Jasp Behandlung mittels Cell Counting Kit-8 (CCK8) Assay (Dojindo, Kumamoto, Japan) bewertet. Die Zellen wurden 2 h in einem Zellinkubator bei 37 °C unter 5% CO₂ mit 10% (v/v) CCK8-Lösung inkubiert. Dann übertrugen wir 100 μl des Reaktionsgemisches in Vertiefungen einer 96-Well-Platte und maßen die Absorption (OD) des Formazan-Farbstoffprodukts in der Kultur bei 450 nm mit einem Multiscan UV-Vis-Spektrophotometer (Safire2; TECAN, Männedorf, Schweiz). Zusätzlich zählten wir ungefähre Zellzahlen mit einem automatisierten Zellzähler (AMQAX1000, Life Technologies). Vor dem Zählen wurden BMSCs enzymatisch von TiO₂-Nanoröhren abgelöst und mit Trypanblau (Sigma–Aldrich) gefärbt.
Alkalische Phosphatase Färbung und ALP-Aktivitätsanalyse
BMSCs wurden auf fünf verschiedene TiO₂-Nanoröhren-modifizierte Titanscheiben (30, 40, 50, 60 oder 70 V) mit einer Dichte von 3×10⁴ pro Vertiefung gesät und in osteogenem Medium kultiviert. Reagenzien wurden wie oben beschrieben hinzugefügt. Nach 7 Tagen Inkubation wurden BMSCs, kultiviert auf TiO₂-Nanoröhren, dreimal mit PBS gewaschen, mit 4% Paraformaldehyd fixiert und in alkalischer Phosphatase (ALP) Arbeitslösung eines ALP-Kits gemäß Herstelleranweisungen (Hongqiao, Shanghai, China) inkubiert. Die Ergebnisse wurden nach Waschen mit PBS unter einem Stereomikroskop beobachtet.
Für die ALP-Aktivitätsanalyse wurden Zellen zunächst mit RIPA-Puffer ohne Protease- und Phosphatase-Inhibitoren lysiert, und die zentrifugierten Lysate wurden mit einem ALP Assay Kit (Beyotime Institute of Biotechnology, Jiangsu, China) gemäß Protokoll analysiert. Die Aktivität wurde schließlich auf die Proteinkonzentration des entsprechenden Lysats normiert.
Immunzytochemie
Nach 3 Tagen Cyto D und Jasp Behandlung wurden BMSCs 20 min bei Raumtemperatur mit 4% Paraformaldehyd fixiert und dann dreimal mit PBS gewaschen. Die Zellen wurden 30 min mit 0,3% Triton-X 100 permeabilisiert, dreimal mit PBS gewaschen und 1 h bei Raumtemperatur im Dunkeln mit Rhodamin-konjugiertem Phalloidin gefärbt. Dann wurden die Zellen mit PBS gespült und 10 min bei Raumtemperatur mit DAPI (Beyotime Institute of Biotechnology) gegengefärbt. Nach drei weiteren Waschgängen mit PBS wurden Proben auf Objektträgern fixiert und per Konfokalmikroskopie beobachtet.
Western Blot
Zur Bewertung der Proteinexpression wurden BMSCs, kultiviert auf TiO₂-Nanoröhren, mit Trypsin (Gibco) geerntet. Die Zellen wurden dreimal mit PBS gewaschen und 30 min auf Eis in RIPA-Puffer ergänzt mit Protease- und Phosphatase-Inhibitor-Cocktail lysiert. Das Lysat wurde durch Zentrifugation bei 12.000×g für 15 min bei 4 °C gesammelt. Die Konzentration der Gesamtproteine im Überstand wurde mit einem Bicinchonsäure (BCA) Proteassay-Kit (Beyotime) gemäß Herstelleranweisungen gemessen. Ladepuffer wurde zu den Proteinenproben wie oben gegeben, die dann 15 min bei 95 °C gekocht wurden. Für Western Blot Analyse wurden 10 μl der Proteinpräparation auf ein 12,5% SDS-PAGE-Gel (EpiZyme Inc., Cambridge, MA, USA) aufgebracht und 1 h bei 120 V elektrophoretisch getrennt, dann 2 h bei 250 mA auf eine Polyvinylidendifluorid (PVDF) Membran elektrotransferiert. Die Membranen wurden dann 1 h bei Raumtemperatur auf einem Schüttler mit 5–10% fettfreier Trockenmilch in TBST blockiert und über Nacht bei 4 °C mit primärem Antikörper verdünnt in Verdünnungspuffer (Beyotime) inkubiert. Als Nächstes wurde fluoreszenz-konjugierter Sekundärantikörper verdünnt in Verdünnungspuffer nach dreimaligem Waschen mit TBST für 5 min zu den Membranen gegeben, und die Membranen wurden 1 h bei Raumtemperatur im Dunkeln inkubiert. Die Proteinbänder wurden mit einem Zwei-Farben-Infrarot-Fluoreszenz-Imaging-System (Odyssey, LiCor Biosciences, Lincoln, NE, USA) detektiert. Insbesondere, wenn die Bänder des internen Referenzproteins vereinheitlicht waren, wurde die Membran gestrippt und mit einem anderen primären Antikörper erneut probiert, gefolgt vom gleichen Prozess. Wir verwendeten GAPDH-Antikörper als unser internes Referenzprotein zur Normierung der Proteinexpression, und die anderen primären Antikörper in dieser Studie waren anti-Vinculin (1:1000 Verdünnung, Abcam, Cambridge, MA, USA), anti-FAK (1:1000 Verdünnung, Cell Signaling Technology, Danvers, MA, USA), anti-Runx2 (1:1000 Verdünnung, Cell Signaling Technology), anti-RhoA (1:1000 Verdünnung, Cell Signaling Technology), anti-F-Aktin (1:500 Verdünnung, Abcam), anti-Osx (1:500 Verdünnung, Abcam) und anti-pYAP (1:1000 Verdünnung, Cell Signaling Technology). Sekundärantikörper waren Ziege anti-Maus IgG H&L (IRDye® 680RD, 1:5000 Verdünnung, Abcam) und Ziege anti-Kaninchen IgG H&L (IRDye® 680RD, 1:5000 Verdünnung, Abcam).
Quantitative Echtzeit-PCR
Quantitative Echtzeit-PCR wurde am Tag 7 durchgeführt, um die Genexpression von runt-verwandtem Transkriptionsfaktor 2 (Runx2), Osterix (Osx), Alp, Osteocalcin (OCN), RhoA, YAP, TAZ, Vinculin (VCL), fokaler Adhäsionskinase (FAK) und Megakaryoblastischem Leukämie 1 (MKL1) in Zellen zu bewerten, die in osteogenem Medium auf TiO₂-Nanoröhren gewachsen waren. Gesamte RNA wurde aus den Zellen mit einem Total RNA Kit (R6812-01HP, Omega Bio-Tek Inc., Norcross, GA, USA) extrahiert. Konzentration und Reinheit der RNA-Proben wurden durch optische Dichte bei Wellenlänge 260 bestimmt und nur Proben mit sowohl A260/280- als auch A260/230-Verhältnissen über 1,8 wurden analysiert. RNA-Proben wurden mit einem qScript cDNA Synthese-Kit (Takara, Shiga, Japan) gemäß Herstelleranweisungen in cDNA revers-transkribiert. Quantitative Echtzeit-PCR wurde mit SYBR® Premix Ex Taq™ (Takara) باستخدام einem QuantStudio 6 Flex Echtzeit-PCR-System (Life Technologies) durchgeführt. GAPDH, ein Housekeeping-Gen, wurde als interne Referenz verwendet. Daten wurden mit der vergleichenden Ct (2−ΔΔCt) Methode analysiert und als Fold-Changes im Vergleich zur Kontrolle ausgedrückt. Die Sequenzen der verwendeten Primer sind in Tabelle 1 aufgeführt.
Statistische Analyse
Alle Daten sind repräsentativ für mindestens drei unabhängige Experimente mit Triplikaten, sofern nicht anders angegeben. Daten werden als Mittelwert ± Standardabweichung (SD) ausgedrückt. Unterschiede zwischen Gruppen wurden durch Einfaktorielle Varianzanalyse gefolgt von Student-Newman-Keuls Post-hoc-Test oder Student's t-Test bewertet. P-Werte < 0,05 wurden als statistisch signifikant betrachtet.
Ergebnisse
Oberflächencharakterisierung
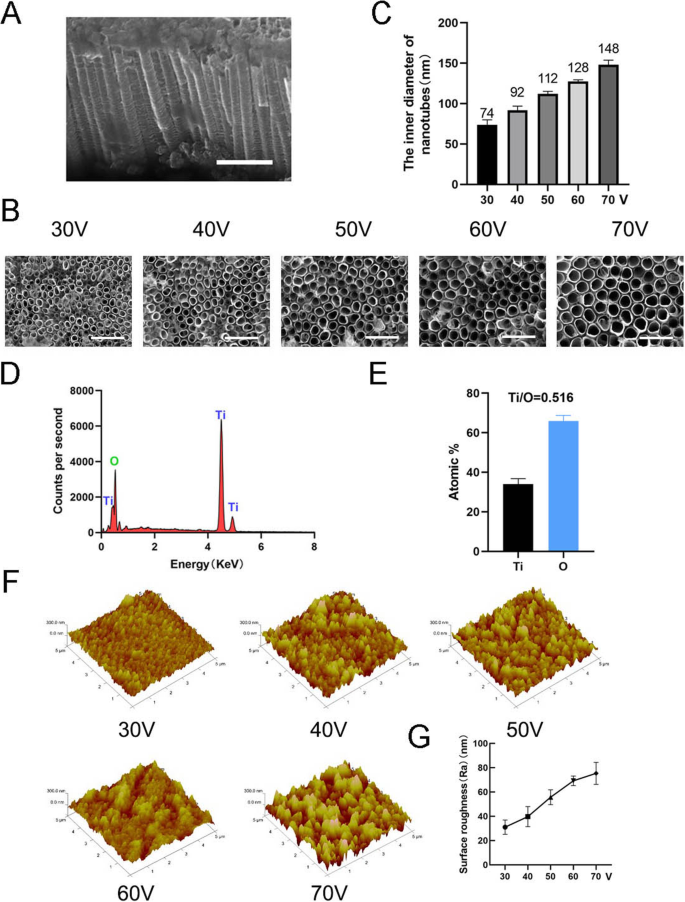
Zur Herstellung der Nanotopographie wurden TiO₂-Nanoröhren auf einem reinen Titansubstrat mittels anodischer Oxidation bei verschiedenen konstanten Spannungen (30, 40, 50, 60 und 70 V) für 1 h hergestellt (Abb. 1). Ein gleichmäßig verteiltes Array selbstassemblierter Nanoröhren wurde durch Rasterelektronenmikroskopie (SEM) beobachtet. Seiten- und Draufsicht der Nanoröhren sind in Abb. 2a, b gezeigt. Die Höhe der Nanoröhren in allen Proben dieser Studie betrug ca. 2 μm, während die Innendurchmesser der Nanoröhren ca. 74 nm (30 V), 92 nm (40 V), 112 nm (50 V), 128 nm (60 V) und 148 nm (70 V) betrugen (Abb. 2c). Dies zeigte, dass die Höhe der Nanoröhren mit der Anodisierungszeit und der Innendurchmesser mit der Anodisierungsspannung zusammenhing. Röntgenenergiedispersive Analyse (EDS) wurde dann durchgeführt, um die elementare Zusammensetzung der Nanoröhren zu analysieren. Dies zeigte, dass die Nanoröhren nur aus zwei Elementen, O und Ti, bestehen (Abb. 2d, e). Rasterkraftmikroskopie (AFM) wurde verwendet, um die nanoröhrenartigen Strukturen zu detektieren und das arithmetische Mittel der Profilabweichung der Nanoröhren als Oberflächenrauheit (Ra) zu messen (Abb. 2f). Die Daten zeigten, dass die Oberflächenrauheit der Nanoröhren mit zunehmendem Durchmesser (d.h. der Anodisierungsspannung) zunahm (Abb. 2g).
TiO₂-Nanoröhren induzieren osteogene Differenzierung von MSCs
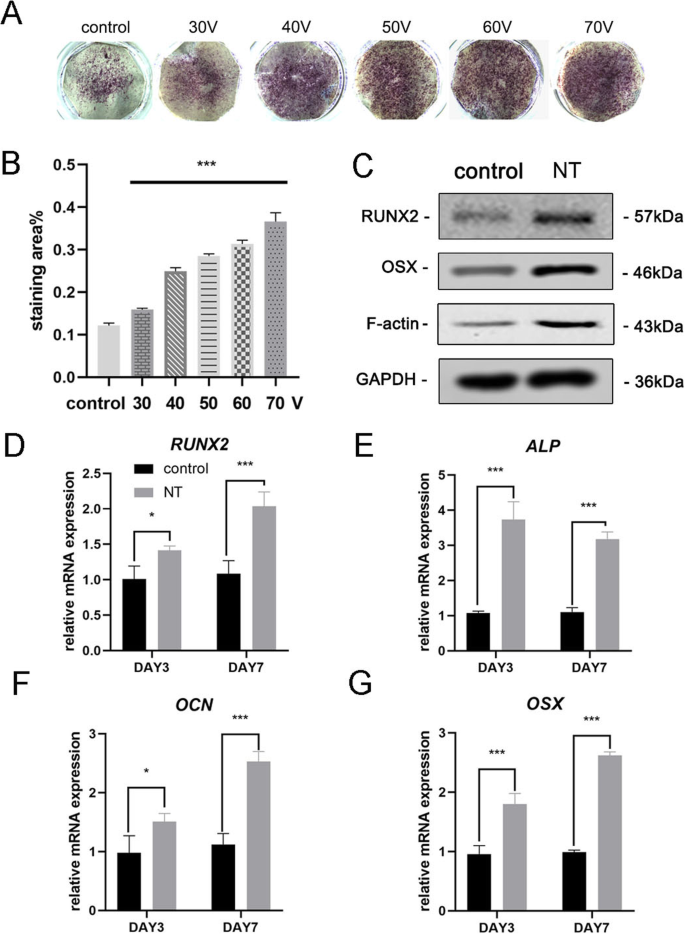
Nach 7 Tagen Osteoinduktion wurde zuerst ALP-Färbung durchgeführt, um die osteogene Differenzierung von MSCs zu bewerten. Die Färbungsergebnisse zeigten, dass MSCs, kultiviert auf TiO₂-Nanoröhren, höhere ALP-Aktivität aufwiesen als Zellen, kultiviert auf glattem Titansubstrat (Kontrollgruppe) (Abb. 3a). Die statistische Analyse der Färbungsfläche zeigte, dass die Fähigkeit der Nanoröhren, osteogene Differenzierung zu induzieren, im Vergleich zur Kontrollgruppe signifikant erhöht war. Gleichzeitig beobachteten wir einen Trend, dass innerhalb des Durchmesserspektrums dieses Experiments, je größer der Durchmesser der TiO₂-Nanoröhren, desto stärker die Fähigkeit, osteogene Differenzierung zu induzieren (Abb. 3b). Daher wurde die 70 V Gruppe in nachfolgenden Experimenten verwendet, um die Ergebnisse besser darzustellen. Als Nächstes analysierten wir die osteogene Genexpression an Tag 3 und 7. MSCs, kultiviert auf TiO₂-Nanoröhren für 3 und 7 Tage, zeigten beide signifikante Förderung der Expression osteogener Gene (RUNX2, ALP, OCN und OSX) im Vergleich zur Kontrollgruppe (Abb. 3d–g). Western Blot Ergebnisse bestätigten, dass die Proteinexpression von RUNX2 und OSX nach 7 Tagen Osteoinduktion ebenfalls zunahm (Abb. 3c). Interessanterweise fanden wir, dass F-Aktin in der TiO₂-Nanoröhren-Gruppe hochreguliert war. Daher war offensichtlich, dass TiO₂-Nanoröhren MSCs in Richtung Osteoblasten-Differenzierung lenkten, was mit dem Durchmesser der Nanoröhren zusammenhing. Unsere Ergebnisse deuteten auch auf die Beteiligung von F-Aktin in diesem Prozess hin.
F-Aktin vermittelt Osteoblasten-Differenzierung von MSCs auf TiO₂-Nanoröhren
Um weiter zu erforschen, ob F-Aktin an der nanotopographie-induzierten Zelldifferenzierung beteiligt war, verwendeten wir zwei Reagenzien, Jasplakinolid (Jasp) und Cytochalasin D (Cyto D), um die F-Aktin-Polymerisation positiv bzw. negativ zu regulieren. Die konfokalen Photomikrographien der Rhodamin-Phalloidin-Färbung zeigten, dass F-Aktin in der Cyto D Behandlungsgruppe fast depolymerisiert war und faserige Strukturen selten gesehen wurden, während Jasp F-Aktin stabilisierte und polymerisierte, verifiziert durch deutlichere und hellere bündelartige Strukturen als in der Kontrollgruppe (Abb. 5a). Zusätzlich bestätigte Western Blot Analyse, dass die Proteinexpression von F-Aktin beeinflusst wurde, was bewies, dass Cyto D und Jasp beide wie erwartet wirkten (Abb. 5b). Zellproliferationsassay zeigte, dass Cyto D die Zellproliferation signifikant hemmte, während Jasp das Zellwachstum förderte (Abb. 4a). Die Zellzahlergebnisse stimmten mit diesem Befund überein (Abb. 4b).
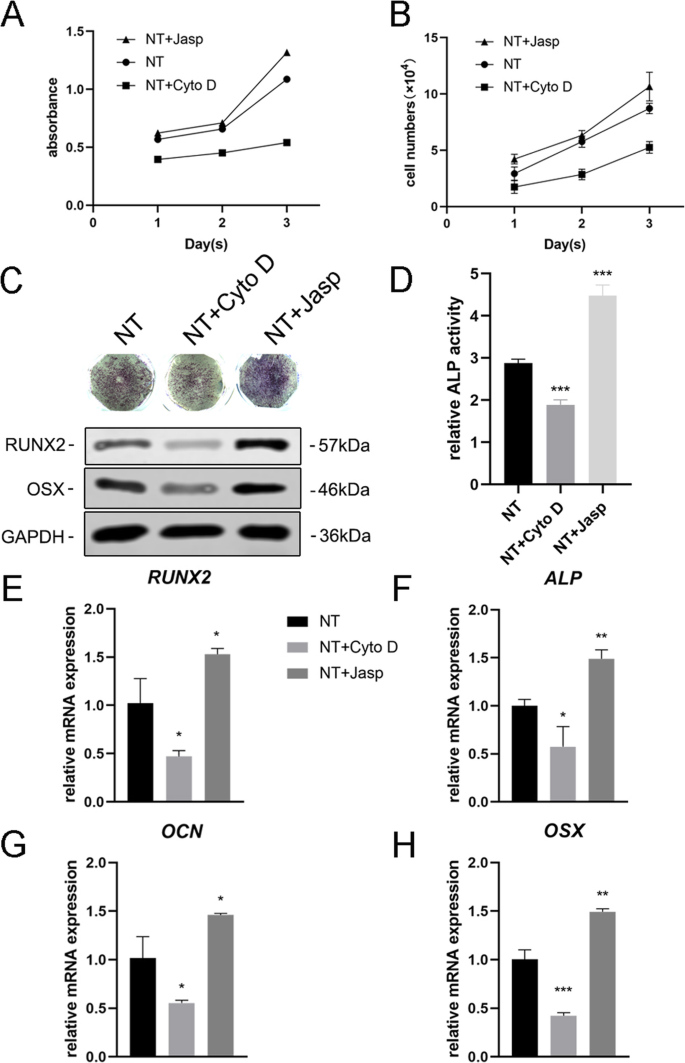
Als Nächstes bewerteten wir die Fähigkeit von MSCs, sich in Osteoblasten zu differenzieren, um zu untersuchen, ob F-Aktin diesen Prozess vermittelte. Zunächst detektierten wir ALP als frühen Marker der Osteogenese. Im Vergleich zur Kontrollgruppe reduzierte Cyto D Behandlung die Expression von ALP und seine Aktivität, während sie in der Jasp Behandlungsgruppe hochreguliert war (Abb. 4c, d). Konsistent mit diesem Ergebnis führte Jasp Behandlung zu einem Anstieg der Proteinspiegel von RUNX2 und OSX, während Cyto D den gegenteiligen Effekt hatte (Abb. 4c). In Übereinstimmung damit zeigten die mRNA-Expressionsspiegel osteospezifischer Gene, einschließlich RUNX2, ALP, OCN und OSX, nach Medikamentenbehandlung den gleichen Trend (Abb. 4e–h). Alles in allem deuteten diese Daten darauf hin, dass F-Aktin eine wichtige Rolle im Prozess der osteogenen Differenzierung von MSCs, induziert durch TiO₂-Nanoröhren, spielte. Die Förderung der F-Aktin-Depolymerisation hemmte die nanoröhreninduzierte Osteoblasten-Differenzierung, während die Stabilisierung und Polymerisation von F-Aktin die Osteoblasten-Differenzierung verstärkte.
F-Aktin regulierte Osteoblasten-Differenzierung von MSCs auf TiO₂-Nanoröhren über MKL1 und YAP/TAZ
Um den zugrundeliegenden Mechanismus der Beteiligung von F-Aktin an der Regulation des Schicksals von MSCs zu sezieren, untersuchten wir Proteine/Moleküle, die direkt mit F-Aktin interagieren oder die F-Aktin-Polymerisation beeinflussen. Zunächst versuchten wir zu identifizieren, wie die Nanotopographie das Gleichgewicht zwischen F-Aktin und G-Aktin beeinflusste. TiO₂-Nanoröhren als physikalisches Signal unterscheiden sich von membrangängigen chemischen Signalen und müssen daher einige Komponenten der Zellmembran nutzen, um Reize in die Zellen zu übertragen. Zunehmende Beweise deuten darauf hin, dass der fokale Adhäsionskomplex, einschließlich Integrin, Talin, fokaler Adhäsionskinase (FAK), Vinculin (VCL), Tensin und anderer Proteine, als Signalträger fungiert, der Zellen über den Zustand der extrazellulären Matrix (ECM) informiert und somit ihr biologisches Verhalten beeinflusst [22, 23]. Noch wichtiger bindet F-Aktin über solche fokalen Adhäsionskomplexe an Integrine und bildet dadurch mechanische Verknüpfungen zwischen intrazellulären Aktinbündeln und der ECM [24]. Folglich analysierten wir als Nächstes die Expression von Komponenten des fokalen Adhäsionskomplexes. Die Ergebnisse zeigten, dass die Protein- und mRNA-Expression von VCL und FAK konsistent mit der Veränderung von F-Aktin waren, was anzeigte, dass der fokale Adhäsionskomplex am Prozess der osteogenen Differenzierung von MSCs, induziert durch TiO₂-Nanoröhren, beteiligt war (Abb. 5b und 6a, b). Zusätzlich fanden wir, dass RhoA, ein kleines GTPase-Protein in der Rho-Familie der GTPasen, in der Jasp Behandlungsgruppe hochreguliert und durch Cyto D inhibiert wurde (Abb. 5b und 6a, b). RhoA ist ein wichtiges upstream Signaltransduktionsmolekül im MAPK-Signalweg und kann durch FAK reguliert werden [25, 26]. Die primäre Funktion von RhoA ist die Förderung der Polymerisation und Stabilität von Stressfasern (F-Aktin) und der Assemblierung des fokalen Adhäsionskomplexes [27]. Zusammenfassend legten diese Daten nahe, dass TiO₂-Nanoröhren die F-Aktin-Polymerisation über den fokalen Adhäsionskomplex und RhoA beeinflussen konnten.
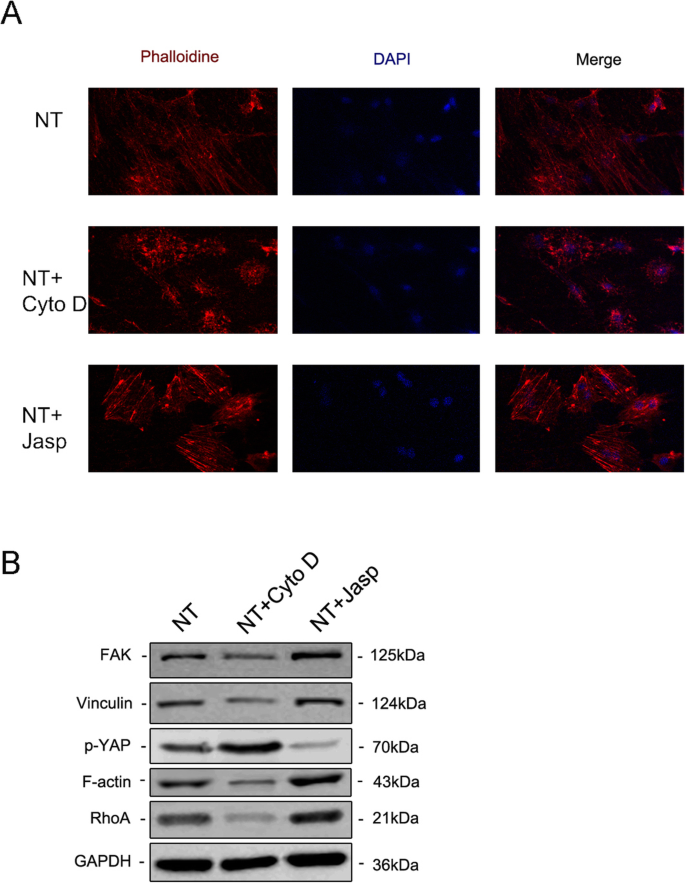
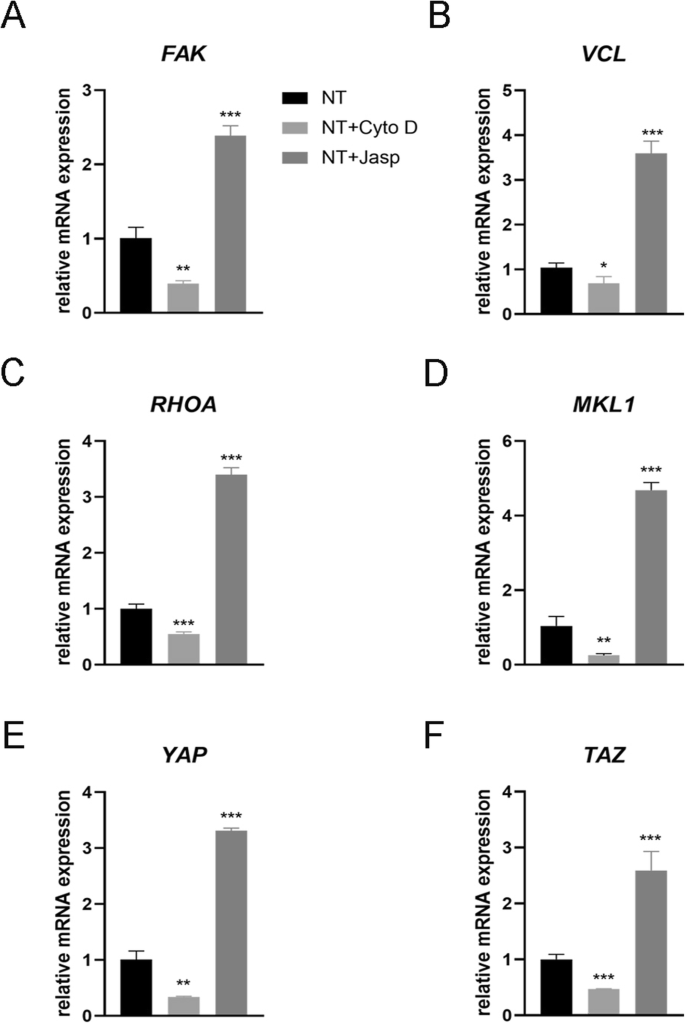
Aber wie reguliert F-Aktin das Zellschicksal? Die meisten Studien haben gezeigt, dass F-Aktin an Zellmigration, Zellteilung, Endozytose und insbesondere Tumorzellinvasion beteiligt ist [28–30]. Wenige Studien haben vorgeschlagen, dass F-Aktin auch Zelldifferenzierung regulieren könnte, ganz zu schweigen von seinem spezifischen molekularen Mechanismus [31, 32]. Folglich suchten wir nach Artikeln, die F-Aktin-Veränderungen erwähnten, und fanden, dass YAP/TAZ, zwei eng verwandte transkriptionale Koaktivatoren im Hippo-Signalweg, die zwischen Zytoplasma und Zellkern pendeln, als Mechanotransduktoren bei der Regulation der MSC-Differenzierung dienen könnten [33–35]. Zusätzlich fanden wir, dass MKL1, ein Schlüsselregulator der glatten Muskelzell-Differenzierung, der mit dem Transkriptionsfaktor Serum Response Factor interagiert, an G-Aktin binden und ebenfalls zwischen Zytoplasma und Zellkern zirkulieren kann [21, 36]. Unsere Ergebnisse identifizierten letztlich die Beteiligung von YAP/TAZ und MKL1 an der nanoröhreninduzierten Osteoblasten-Differenzierung, vermittelt durch F-Aktin (Abb. 5b und 6d–f). Interessanterweise zeigte die Proteinexpression von phosphoryliertem YAP den entgegengesetzten Trend, was anzeigte, dass nicht nur die Expression von YAP geändert wurde, sondern auch die Phosphorylierung von YAP durch Cyto D und Jasp verändert wurde (Abb. 5b). Dieses Ergebnis war konsistent mit dem Bericht, dass die Phosphorylierung von YAP/TAZ im Zytoplasma sequestriert werden kann [35].
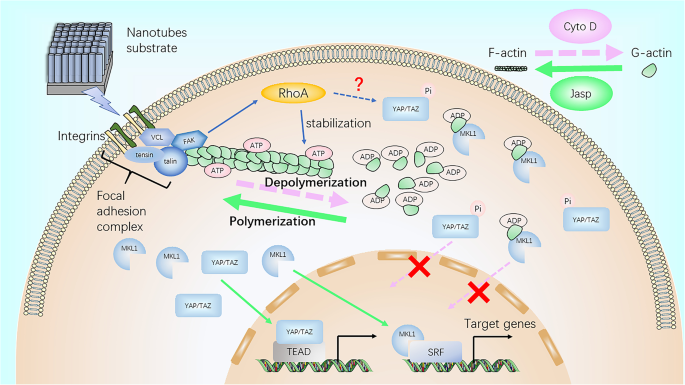
Zusammenfassend demonstrierten unsere Ergebnisse vorläufig, dass F-Aktin die Osteoblasten-Differenzierung von MSCs auf TiO₂-Nanoröhren über MKL1 und YAP/TAZ regulierte (Abb. 7).
Diskussion
Titan und Titanlegierungen sind die am weitesten verbreiteten Metallmaterialien in orthopädischen klinischen Implantaten aufgrund der guten Eigenschaften von Titan [3]. Allerdings ist aseptische Lockerung immer noch ein dringendes Problem, das gelöst und verbessert werden muss, und der Schlüssel liegt wahrscheinlich in der Verbesserung der Integration von Implantat und Wirtsknochen. Frühere Studien haben gezeigt, dass Oberflächenbeschichtung und -modifikation oder Immobilisierung biofunktionaler Moleküle förderlich für die Osseointegration sein werden [37]. Kürzlich hat die Oberflächentopographie von Implantaten die Aufmerksamkeit vieler Forscher auf sich gezogen dank Studien zur Zellantwort auf physikalische Signale [9–11, 13, 38]. In dieser Studie demonstrierten wir die Fähigkeit von Nanoröhren, die osteogene Differenzierung von MSCs zu fördern, und diese Fähigkeit wurde mit zunehmendem Innendurchmesser der Nanoröhren (30–70 V) verstärkt. Dies wird helfen, den Durchmesser der Nanoröhren auf der Implantatoberfläche zu leiten.
Als topographische Struktur verändern Nanoröhren zunächst die physikalischen Eigenschaften des Materials, wie Adsorptionskapazität und elektrische und thermische Leitfähigkeit. Diese physikalischen Eigenschaften bestimmen ihre Anwendung im industriellen Bereich. Beispielsweise müssen die meisten Hochspannungstransformatoren mit Isoliermaterial gefüllt werden, meist Transformatoröl oder Isoliergas. Wenn die Isolierung eines Transformators durch Überhitzung und Teilentladung versagt, wird ein schwerer Entladungsunfall auftreten. Daher ist das Finden einer effektiven Methode, die die Konzentration und Arten gelöster Gase oder Isoliergas-Zerfallsbestandteile in einem Transformator genau detektiert, notwendig, um den Betriebszustand des Transformators zu überwachen [8, 39–41]. Der traditionelle Ansatz ist die Suche nach Materialien mit guter Gasadsorption in Übergangsmetallen, die reich an d-Elektronen sind, wie Pd(111) [39]. Heutzutage werden Nanoröhren aufgrund ihrer guten Gasadsorptionseigenschaften breit untersucht. He et al. fanden, dass CuO-BNNT für die Adsorption von C₂H₂ geeignet war, wegen seiner stärkeren Adsorption auf C₂H₂ [8]. Gleichzeitig kann TiO₂ selbst ein Gas-Sensing-Material sein. Gui et al. fanden, dass Co-dotiertes TiO₂ die Gasadsorptionskapazität weiter verbesserte und eine überlegene Adsorptionsfähigkeit und Leitfähigkeitsänderung gegenüber C₂H₄-Molekülen aufwies [40]. Konsistent mit dieser Studie zeigte Mn-dotiertes Graphen ebenfalls verbesserte Leitfähigkeit und überlegene Fähigkeit zur C₂H₂- und CO-Detektion als reines Graphen [41]. Die obige Forschung deutet darauf hin, dass die in unserem Experiment hergestellten TiO₂-Nanoröhren eine potenzielle Anwendung im Bereich der Überwachung des Betriebszustands eines Transformators haben. Allerdings müssen die Adsorptionskapazität und elektrische Leitfähigkeit der Nanoröhren für Gase weiter untersucht werden, insbesondere ob diese Eigenschaften nach Dotierung mit Übergangsmetallen (z.B. Mn) verbessert werden.
Zusätzlich zur Veränderung der physikalischen Eigenschaften einer Oberfläche beeinflusst die Nanoskalen-Morphologie auch das biologische Verhalten der daran anhaftenden Zellen. Zellen haften zuerst an der Materialoberfläche und migrieren, proliferieren und differenzieren dann. Im Vergleich zu einer flachen Oberfläche bietet die hohle Struktur der Nanoröhren weniger Adhäsionsstellen für Zellen. Daher beginnen sich, damit Zellen sich stetig an der Nanoröhrenoberfläche anhaften und das biomechanische Gleichgewicht innerhalb der Zelle aufrechterhalten können, der fokale Adhäsionskomplex zu assemblieren und zu reifen, und F-Aktin wird stark und stabil.
F-Aktin, ein linearer Polymer-Mikrofilament bestehend aus G-Aktin-Monomeren, ist einer der drei Hauptbestandteile des Zytoskeletts. Als mechanische Belastungsstruktur wird F-Aktin allgemein als beteiligt an Zellteilung, Zellmigration, Endozytose und Tumorzellinvasion angesehen [28–30], aber einige jüngste Studien zeigten, dass es auch Zelldifferenzierung beeinflussen kann [31–33, 36]. Beispielsweise induziert Aktin-Zytoskelett-Depolymerisation durch Simvastatin Chondrozyten-Differenzierung [31], und Aktin-Depolymerisation verstärkt adipogene Differenzierung in humanen Stromastammzellen [32]. Unsere Ergebnisse zeigten ebenfalls, dass MSCs, kultiviert auf Nanoröhren, im Vergleich zur Kontrollgruppe höhere F-Aktin-Spiegel und eine offensichtlichere faserige Struktur aufwiesen. Gleichzeitig verstärkte die Förderung der F-Aktin-Polymerisation durch Jasp die osteogene Differenzierung, während die Depolymerisation von F-Aktin die osteogene Differenzierung hemmte, was darauf hindeutete, dass F-Aktin die TiO₂-Nanoröhren-induzierte osteoblastische Differenzierung von MSCs vermittelt.
F-Aktin kann durch Rho-GTPasen, Mitglieder der Ras-Superfamilie [23, 42], reguliert werden, und Rho kann Aktin-Reorganisation durch mindestens zwei Effektoren, ROCK und Dia, induzieren. ROCK wird durch Bindung an Rho-GTP aktiviert und dann spielt Myosin-Leichtkette (MLC), das Substrat von ROCK, eine wichtige Rolle in der F-Aktin-Assemblierung. ROCK hemmt die Aktivität von MLC-Phosphatase, was zu einem Anstieg der MLC-Phosphorylierung führt, was die ATPase-Aktivität von Myosin II stimuliert und die Assemblierung von F-Aktin fördert. Zusätzlich zielt ROCK auch auf LIM-Kinase (LIMK). Phosphoryliertes LIMK inaktiviert Cofilin durch Phosphorylierung, das F-Aktin in seinem aktiven Zustand disassemblieren kann. Ein anderer Effektor ist Dia, ein Mitglied der Formin-Homologie (FH) Proteinfamilie, die zwei FH-Domänen enthält. Diese Domänen enthalten mehrere prolinreiche Motive, die an das G-Aktin-bindende Protein Profilin binden. Diese Interaktion trägt zur Aktin-Polymerisation und F-Aktin-Organisation bei [42]. Wir detektierten eines der Rho-GTPasen, RhoA, und fanden, dass die Expression von RhoA konsistent mit dem F-Aktin-Spiegel war. Wir konnten jedoch nicht klar beschreiben, wie die Nanoröhren die Expression von RhoA regulieren, da es viele andere Regulatoren gibt, einschließlich Integrin-Signalisierung, anderer Adhäsionsrezeptoren, G-Protein-gekoppelter Rezeptoren (GPCRs), löslicher Faktoren wie LPA, Rezeptor-Tyrosinkinase-Signalisierung usw. [43].
Da wir wussten, dass F-Aktin durch RhoA reguliert werden kann, fragten wir uns als Nächstes, welche Rolle der fokale Adhäsionskomplex in diesem Prozess spielt, weil fokale Adhäsionskomplexe, die Integrine, Talin, Vinculin, Paxillin und fokale Adhäsionskinase (FAK) enthalten, gebildet werden und reifen, wenn Zellen an der Nanoröhrenoberfläche anhaften. Integrine sind transmembranäre Heterodimere, die die ECM mit den anderen fokalen Adhäsionsproteinen koppeln, um Zelladhäsion zu erleichtern. Sie fungieren nicht nur einfach als Haken, sondern übertragen der Zelle auch kritische Signale über die Natur ihrer Umgebung, die zusammen mit anderen Signalen wie EGFR die Zelle veranlassen, Entscheidungen über ihr biologisches Verhalten zu treffen. Diese Signale werden weiter an F-Aktin übertragen, das direkt mit den fokalen Adhäsionskomplexen verbunden ist. Einerseits verursacht die Nanoskalen-Morphologie Assemblierung und Reifung des fokalen Adhäsionskomplexes. Andererseits rekrutieren Kinasen wie FAK und Src-Kinase-Familienmitglieder Moleküle wie CRK, um die Assemblierung und Reifung der fokalen Adhäsionskomplexe selbst zu regulieren [44–46]. Unsere Ergebnisse demonstrierten, dass die Bildung und Reifung fokaler Adhäsionskomplexe durch F-Aktin-Depolymerisation beeinträchtigt wurden, was auf ein Feedback von fokalen Adhäsionskomplexen zur Aktin-Assemblierung im Einklang mit veröffentlichten Berichten hindeutete.
Es sollte jedoch nicht ignoriert werden, dass diese Proteine in fokalen Adhäsionskomplexen die Funktion der Signaltransduktion haben [47]. Das heißt, Nanoröhren können direkt die Genexpression durch Signalkaskaden regulieren, und F-Aktin kann nur an diesem Prozess teilnehmen oder davon beeinflusst werden. Beispielsweise kann der Dual-Kinase-Komplex von FAK und Src Rho-GTPasen wie RhoA regulieren. Dies zeigt, dass Nanoröhren RhoA über Integrine und den FAK/Src-Komplex regulieren können. Zusätzlich kann Src, ein nicht-rezeptor-Tyrosinkinase-Protein, Ras (kleines GTPase) durch Phosphorylierung von FAK an Tyrosinrest 925 aktivieren [47, 48]. Dann aktiviert Ras zahlreiche biochemische Signalwege, einschließlich des gut untersuchten MAPK-Signalwegs und des PI3K/AKT/mTOR-Signalwegs. Im MAPK-Signalweg aktiviert Ras c-Raf, gefolgt von Mitogen-aktivierter Protein-Kinase-Kinase (MAP2K) und dann MAPK1/2, auch bekannt als extrazellulär signal-regulierte Kinase (ERK). ERK wiederum aktiviert Transkriptionsfaktoren wie Serum Response Factor (SRF) und c-Myc, die an der Regulation von Wachstum und Differenzierung beteiligt sind [49]. Was mehr ist, kann Runx2, ein Schlüsseltranskriptionsfaktor in der osteogenen Differenzierung, auch durch ERK reguliert werden [50], und unsere frühere Studie bestätigte, dass mechanische Dehnung die osteogene Differenzierung von BMSCs über den FAK-Erk1/2-Runx2-Signalweg förderte [17]. Daher können wir nicht ausschließen, dass ERK eine Rolle in der nanoröhreninduzierten osteogenen Differenzierung spielt und weitere Studien noch nötig sind.
Was genau ist also die Rolle von F-Aktin bei der Induktion der Differenzierung durch Nanoröhren, da seine Veränderung die Zelldifferenzierung beeinflussen kann? Eine Möglichkeit ist, dass die Veränderung der F-Aktin-Assemblierung invers den FAK-Spiegel regulieren kann, um osteogene Differenzierung über den FAK-Erk1/2-Runx2-Signalweg wie oben beschrieben zu induzieren, da in unseren Ergebnissen fokale Adhäsionskomplexe und Aktin-Polymerisation gleiche Veränderungstrends zeigten, was anzeigte, dass sie als Ganzes auf die extrazelluläre Umgebung reagieren. Allerdings existieren auch andere Möglichkeiten, und zahlreiche Artikel haben gezeigt, dass MKL1 und YAP/TAZ downstream der Aktin-Dynamik-Balance wirken [20, 51–54]. Beide pendeln zwischen Zytoplasma und Zellkern und können helfen, Signale vom Zytoskelett zum Zellkern zu transduzieren.
MKL1, auch als Myokardin-verwandter Transkriptionsfaktor A bezeichnet, ist empfindlich gegenüber Änderungen des G-Aktin-Spiegels. Wenn zytoplasmatische G-Aktin-Spiegel steigen, bindet monomeres G-Aktin an MKL1 und verhindert dessen Bindung an SRF und Aktivierung der Transkription. SRF-Zielgene umfassen Aktine wie glatte Muskelaktin (SMA) sowie andere Aktin-bindende Proteine, einschließlich Immediate-Early-Gene wie c-fos und egr1. Jüngste Studien haben gezeigt, dass die Veränderung der SRF-Aktivität Adipogenese durch Aktivierung des Adipogenese-Transkriptionsfaktors Peroxisom-Proliferator-aktivierter Rezeptor γ (PPARγ) regulieren kann, und auch Knochenbildung über IGF-1 und Runx2-Signalwege regulieren kann [55, 56].
YAP und TAZ sind zwei transkriptionale Koaktivatoren im Hippo-Signalweg, identifiziert als wichtiger Regulationsweg, der Zellproliferation beschränkt, wodurch Organgröße und Morphogenese kontrolliert werden [20]. Large Tumor Suppressor Gene 1 und 2 (LATS1/2) phosphorylieren sie, wodurch eine Bindungsstelle für 14-3-3-Proteine entsteht, deren Bindung ihren nuklearen Import verhindert [53, 54]. Als Folge werden phosphorylierte Formen von YAP/TAZ im Zytoplasma sequestriert, was die Expression von Genen wie Ctgf und Areg verhindert. Zusätzlich haben einige Studien gezeigt, dass YAP/TAZ mit T-Box 5 (TBX5), RUNX2 und p73 interagieren können, um Genexpression zu regulieren [57–59]. Weiterhin wurde gezeigt, dass Zelladhäsion an Zellmatrix-Proteine YAP-Kernlokalisation durch eine Integrin/FAK/Src-Achse auslöst. In unserer Studie deuteten die Ergebnisse darauf hin, dass dieser Signalweg möglicherweise an der nanoröhreninduzierten Differenzierung beteiligt war. Weitere Studien zu den downstream Mediatoren der Integrin/FAK/Src-Achse sollten durchgeführt werden, um den spezifischen Mechanismus zu klären.
Andererseits illustrieren immer mehr Studien, dass F-Aktin mit Hippo-Signalisierung interagiert und irgendwie die Phosphorylierung von YAP inhibiert [54, 60], was konsistent mit unseren experimentellen Ergebnissen ist, dass die Förderung der F-Aktin-Polymerisation die Expression von phosphoryliertem YAP reduziert. Wir hypothesieren, dass ATP, beteiligt am Transformationsprozess zwischen G-Aktin und F-Aktin, auch eine wichtige Rolle in der Phosphorylierung von YAP spielen könnte, was noch zu untersuchen ist.
Nach Verständnis der oben möglichen molekularen Mechanismen können wir versuchen, einige der in dieser Studie gefundenen experimentellen Phänomene zu erklären. Unsere Ergebnisse zeigten, dass je größer der Durchmesser der Nanoröhren, desto stärker die Fähigkeit der Nanoröhren, osteogene Differenzierung zu fördern. Dies ist konsistent mit früherer Forschung [61, 62]. Der Grund für dieses Phänomen ist, dass je größer der Durchmesser der Nanoröhren, desto weniger Adhäsionsstellen sie den Zellen bieten können, und desto größer die Assemblierung und Reifung der fokalen Adhäsionskomplexe. Zusammen damit werden Stressfasern aus F-Aktin größere Stärke und Stabilität haben. Diese Strukturen verstärken die Signalisierung, die osteogene Differenzierung fördert. Vorhersagbar ist jedoch, dass dieser Effekt signifikant reduziert wird, wenn die Nanoröhren im Durchmesser zu groß werden, was es für Zellen schwierig macht, an der Oberfläche zu haften [12]. Ähnlich kann bei inkonsistenter Höhe der Nanoröhren die Höhenunterschiede zu einer Änderung der Adhäsionsstelle und Umordnung des Zytoskeletts führen, was die Zelldifferenzierung weiter beeinflusst. Interessanterweise können sogar flache Oberflächenmaterialien ohne Nanoröhrenmodifikation Veränderungen in der Zelldifferenzierung induzieren. Zahlreiche Studien haben gezeigt, dass fokale Adhäsionsbildung und Stressfaser-Organisation durch Substratsteifigkeit reguliert werden [63–65], und YAP/TAZ spielt auch eine wichtige Rolle in diesem Prozess. Daher ist offensichtlich, dass die Integrin-FAs (fokale Adhäsionen)-F-Aktin-Achse eine Rolle in der Transduktion physikalischer Signale in intrazelluläre chemische Signale spielt.
Zusammenfassend demonstrierten unsere Ergebnisse, dass F-Aktin die osteoblastische Differenzierung mesenchymaler Stammzellen auf TiO₂-Nanoröhren über MKL1 und YAP/TAZ reguliert, deren Zielgene teilweise die Proliferation und Differenzierung von MSCs erklären. Wir wissen, dass es keine einzelne Veränderung im Signalnetzwerk gibt und jede Veränderung durch zahlreiche Moleküle und Proteine reguliert wird. Ein Typ biologischen Verhaltens muss das Ergebnis der Regulation einer Reihe von Signalwegen sein. Nanoröhren induzieren Zelldifferenzierung, indem sie ein komplexes Netzwerk von Signalen auslösen, einschließlich Integrine, Proteine in fokalen Adhäsionskomplexen, FAK, Src, Rho-GTPase, MAPK-Signalweg, Hippo-Signalweg und anderen berichteten Signalwegen. Mindestens genauso wichtig gibt es viele Signalkreisläufe im Signalnetzwerk und ein downstream Signal kann das upstream Signal über Feedback regulieren. In dieser Studie fanden wir, dass Vinculin und FAK rückwärts durch F-Aktin-Assemblierung reguliert werden können, was die Unsicherheit der molekularen Funktion erhöht. Daher warten weitere Details des molekularen Mechanismus auf weitere Untersuchung.
Schlussfolgerungen
Unsere Ergebnisse zeigten, dass TiO₂-Nanoröhren die osteogene Differenzierung von MSCs förderten, und diese Fähigkeit wurde mit zunehmendem Durchmesser der Nanoröhren innerhalb eines bestimmten Bereichs (30–70 V) verstärkt. F-Aktin vermittelte die nanoröhreninduzierte Zelldifferenzierung über MKL1 und YAP/TAZ, was einen neuen Einblick in die Untersuchung der Zelldifferenzierung liefert.
Verfügbarkeit von Daten und Materialien
Die während der aktuellen Studie verwendeten und analysierten Datensätze sind auf vernünftige Anfrage beim korrespondierenden Autor erhältlich.
Abkürzungen
- MSCs:
- Mesenchymale Stammzellen
- SEM:
- Rasterelektronenmikroskopie
- EDS:
- Röntgenenergiedispersive Analyse
- AFM:
- Rasterkraftmikroskopie
- ALP:
- Alkalische Phosphatase
- Cyto D:
- Cytochalasin D
- Jasp:
- Jasplakinolid
- VCL:
- Vinculin
- FAK:
- Fokale Adhäsionskinase
- BCA:
- Bicinchonsäure
- PVDF:
- Polyvinylidendifluorid
- Runx2:
- Runt-verwandter Transkriptionsfaktor 2
- Osx:
- Osterix
- OCN:
- Osteocalcin
- YAP:
- Yes-assoziiertes Protein
- MKL1:
- Megakaryoblastisches Leukämie 1
- FBS:
- Fötales Kälberserum
- ECM:
- Extrazelluläre Matrix
- MLC:
- Myosin-Leichtkette
- LIMK:
- LIM-Kinase
- FH:
- Formin-Homologie
- GPCR:
- G-Protein-gekoppelte Rezeptoren
- MAP2K:
- Mitogen-aktivierte Protein-Kinase-Kinase
- ERK:
- Extrazellulär signal-regulierte Kinase
- SRF:
- Serum Response Factor
- SMA:
- Glatte Muskelaktin
- PPARγ:
- Peroxisom-Proliferator-aktivierter Rezeptor γ
- LATS1/2:
- Large Tumor Suppressor Gen 1 und 2
- TBX5:
- T-Box 5
Nanomaterialien
- Titandioxid (TiO₂) Marktupdate – Q1 2021: Preise, Angebot & Regionaler Ausblick
- TiO₂-Nanofluide: Teil 1 – Herstellung und Schlüsseleigenschaften
- Hybrid-Nanokomplexe aus Seltenerd-Nanopartikeln und Cholesterin hemmen CD44⁺ CSCs im Ehrlich-Karzinom, reduzieren Tumorwachstum um 75 % und verlängern Überleben
- TiO₂-Nanofluide: Anwendungen, Herausforderungen und zukünftige Richtungen – Teil 2
- Optimierte Goldnanopartikel-Platzierung in TiO₂ steigert Farbstoffsolarzellen-Effizienz
- Kontrollierte hydrothermale Synthese von ZnO-Nanokristallen für verbesserte invertierte Polymersolarzellen
- Optimierung von Titanvorläufern für hochleistungsfähige kompakte TiO₂-Schichten in Perowskit-Solarzellen
- Wie elastische Steifigkeit und Oberflächenadhäsion das Sprungverhalten von Nanopartikeln bestimmen
- Optimierung der Perowskit-Solarzellen-Effizienz durch größenkontrollierte Ag-Nanopartikel in einer kompakten TiO₂-Schicht
- Verbessertes Up-Conversion-TiO₂-Nanomaterial steigert Perowskit-Solarzellen-Wirkungsgrad auf 16,3 %